第四章 胞浆内和胞浆外病理性积聚

如前一章所述,肝细胞的形态学改变包括无色物质的异常蓄积(这是非特异性可逆性损伤的标志,根据定义,当原发损伤消失时,这种损伤往往会消退)。其他物质也可能因病理过程而蓄积在细胞质中(表 4.1);然而,在某些情况下,即使去除原发原因,这些物质也通常不会消失。本章可视为前一章的补充和延续,将阐述这些物质的形态学特征 —— 与水分、糖原和脂质(表现为无色物质)不同,这些物质由染色和 / 或颗粒状物质组成,通过常规染色即可识别。此外,还存在具有特定形状和颜色的细胞外蓄积(表 4.2),其诊断识别对于有效评估细胞学样本至关重要。某些物质(如胆汁)通过细胞学检查(而非组织学检查)更容易识别,且无需使用特殊染色。有鉴于此,我仍将细胞学检查视为组织病理学诊断过程的前期准备,且依赖于组织病理学诊断。本章将描述这些蓄积的特征,因为它们对于多项诊断至关重要。
表 4.1 胞浆内积聚物的识别
| 脂褐素 | 铜 | 铁和含铁血黄素 | 蛋白滴 | 嗜酸性颗粒 | 贮积病 | |
|---|---|---|---|---|---|---|
| 颜色 | 蓝色 | 蓝绿色,折光 | 金褐色至蓝黑色 | 微蓝色 | 粉色至红色 | 无色小球 |
| 形状和大小 | 颗粒状,小 | 颗粒状,小 | 小至大团块 | 球状,大 | 颗粒状,小 | 圆形,中小尺寸 |
| 位置 | 肝细胞 | 肝细胞 | 肝细胞和巨噬细胞 | 肝细胞 | 肝细胞 | 肝细胞 |
| 解释 | 氧化应激,衰老 | 可能的铜中毒 | 噬血现象 | 内质网应激 | 许多原发性疾病 | 遗传性(有时为获得性)代谢酶缺陷 |
表 4.2 胞浆外积聚物的识别
| 胆汁 | 淀粉样蛋白 | |
|---|---|---|
| 颜色 | 绿蓝色至蓝黑色 | 粉色至橙色 |
| 形状 | 细长的管型 | 不规则的簇 |
| 位置 | 肝细胞之间 | 肝细胞片周围 |
| 解释 | 胆汁淤积 | 淀粉样变性 |
4.1 胞浆内病理性积聚
4.1.1 脂褐素 (Lipofuscin)
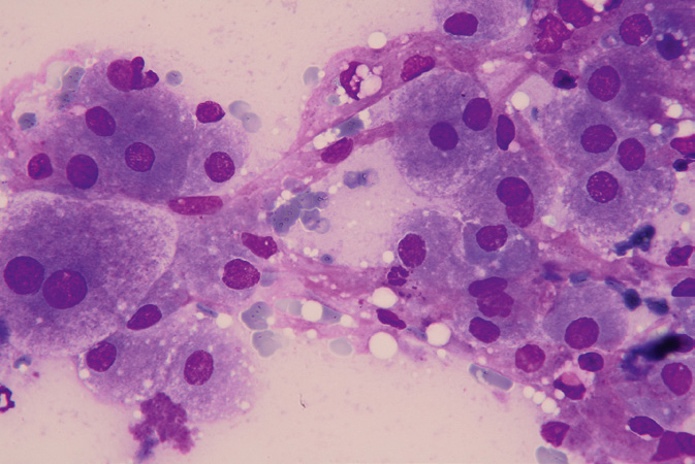
细胞形态学:胞浆内蓝色至绿色的色素,以可变的量分散在细胞质中,有时非常丰富(图 4.1);可以观察到成团块状(图 4.2)。
这是目前为止在肝细胞细胞质中发现的最常见的积聚物。如果肝实质被转移性肿瘤细胞广泛替代,或者在难以识别肝细胞的情况下(例如,当肝细胞嵌入血性物质中时),它对肝细胞的识别很有用。根据选择的染色方法,脂褐素看起来可能不同,嗜碱性程度或多或少(图 4.3)。脂褐素可能存在于正常和受损的肝细胞中,其中色素与无色物质(水或糖原,图 4.4)一起分散在细胞质中,或者散布在脂质小球之间(图 4.5);当发生其他不相关的病理状况时,如胞浆外胆汁淤积(图 4.6),脂褐素也可能积聚在肝细胞中。脂褐素色素的量可能取决于损伤的性质;例如,由铜沉积引起的氧化损伤会产生大量色素积聚。
在超微结构检查中,脂褐素表现为积聚在溶酶体内的色素。这种色素是由溶酶体水解酶对磷脂(据推测来自细胞质细胞器的膜残留物)进行氧化过程的结果,以未消化的残留体形式浓缩 [1]。这种现象是非常有限(有时甚至可以忽略不计)和非特异性退行性过程(如细胞周转增加)的结果。尽管脂褐素的存在被认为主要与病理意义无关,但在老年受试者的样本中,它可以大量积聚 [2]。在几岁以上的猫的肝细胞中,几乎总能发现脂褐素。鉴于上述情况,脂褐素也被称为“衰老色素”或“磨损色素”,因为它倾向于在生命后期积聚,并且由于细胞周转增加而在慢性肝损伤时过早积聚 [3]。作为磷脂碎片,如果溶酶体内部碱化导致溶酶体活性降低 [3] 或如果溶酶体水解酶有遗传缺陷 [4],脂褐素也可能积聚在溶酶体中。在人类、犬和小鼠中,接触胺碘酮(一种引起水解酶功能 pH 值改变的抗心律失常药物)后,可能会出现脂褐素积聚 [5]。
由于其颜色相似,过去脂褐素曾被误认为是胆汁的细胞质积聚 [6]。然而,脂褐素与胞浆内胆汁停滞无关。此外,如前所述,通过细胞学调查评估细胞质内的胆汁积聚实际上是不可能的。Scott 和 Buriko [7] 使用特殊染色和电子显微镜进行的研究结果具有启发性,排除了胆汁来源。这项研究将脂褐素归类为实际上无害的角色,除了增强氧化损伤外,没有诊断意义。重要的是要回顾,根据标准染色的质量,脂褐素可能表现为蓝色至绿色的色素 [8],并且可能积聚在细胞质中,有时呈大的团块状嗜碱性颗粒;在这些情况下,必须小心排除胆汁淤积,后者通常表现为肝细胞间的嗜碱性管型,绝不是细胞质积聚。
脂褐素的存在也可能发生在肿瘤性肝细胞中。据报道,在高分化肝细胞癌的细胞中有少量存在 [9]。
4.1.2 铜 (Copper)
细胞形态学:存在不明显的、模糊的、蓝绿色(teal-colored)、略微折光的颗粒,有时具有晶体样外观。颗粒可以在细胞质中从少量积聚到大量积聚(图 4.7 和 4.8);大多数情况下,肝细胞其他方面正常。偶尔,由于积聚了不明显的无色物质或脂质小球,肝细胞表现出不同程度的扩张;与炎症细胞和纤维化特征相关联是偶发发现(图 4.9)。
使用标准染色方法识别铜积聚的形态特征非常困难,但使用罗丹宁(rhodanine)染色可能非常明显(图 4.10)。受影响的肝细胞细胞质也可能含有少量相关的无色、分散或球状外观的物质 [10];也可能伴有脂褐素积聚。
由铜积聚引起的损伤,在英文文献中定义为“铜中毒 (copper toxicosis)”,是一种可能发生在多种犬种和偶尔发生在猫身上的病理过程。据怀疑,饮食中的铜是肝铜过量的主要来源。存在影响某些犬种的遗传代谢缺陷。最著名的突变发生在贝灵顿梗 (Bedlington terrier) 中,其中 COMM-D1 基因的遗传突变产生一种缺陷蛋白,该蛋白参与细胞质铜向胆汁的转运,从而导致胞浆内铜积聚 [11]。拉布拉多寻回犬 (Labrador retrievers) 可能会经历一种与 ATP7a 和 ATP7b 基因突变相关的肝铜过量综合征 [12]。其他品种,如西高地白梗、斯凯梗 (Skye terrier)、杜宾犬和大麦町犬,铜过量的风险增加,但遗传学特征尚未明确 [13]。混种犬和偶尔的猫也会发生肝铜过量 [14]。过量的铜会导致肝细胞氧化损伤,这可能导致可逆的非特异性损伤;其随时间的持续存在约占慢性肝炎原因的三分之一,这是一种具有不可逆和进行性演变的疾病。
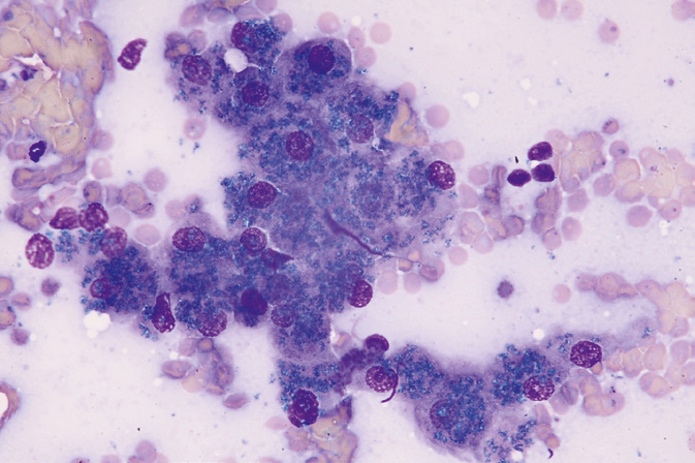
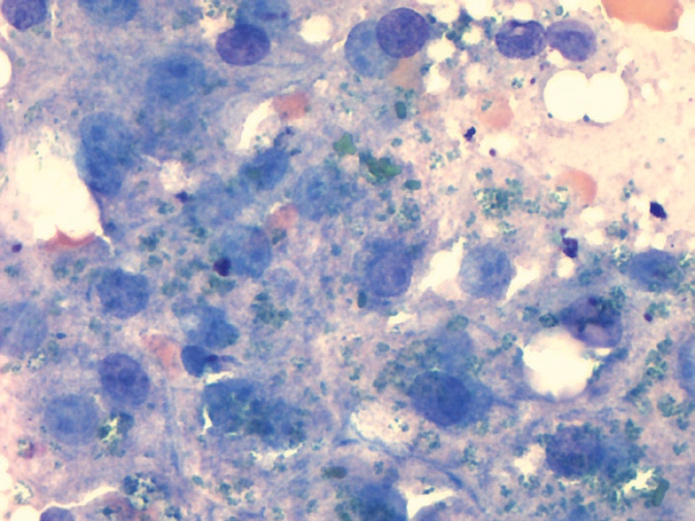
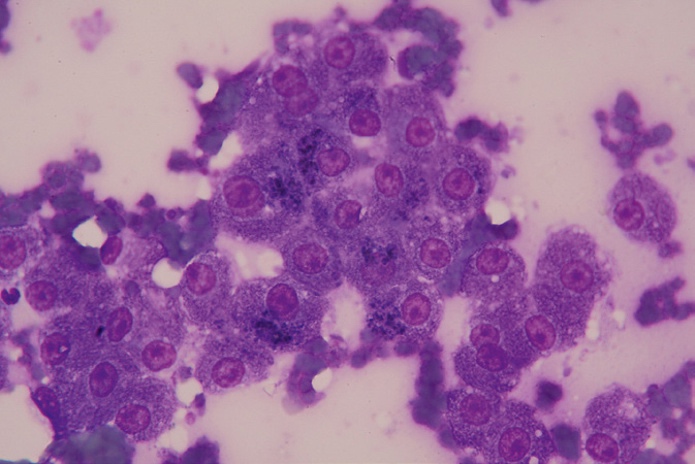
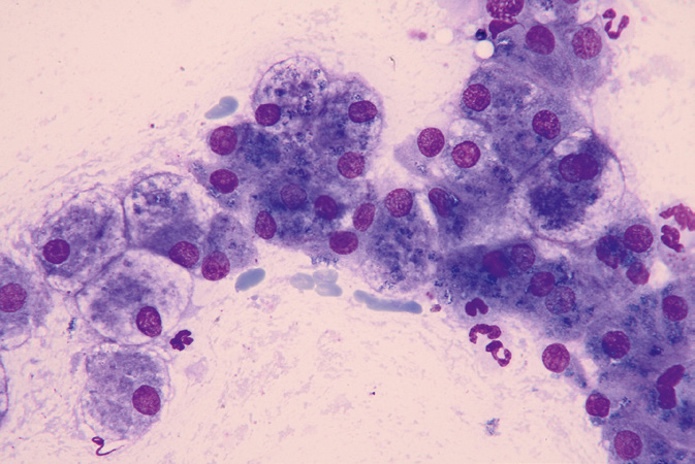
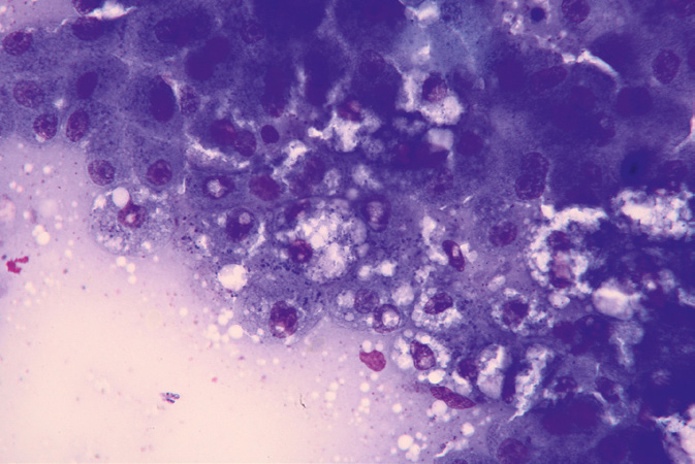
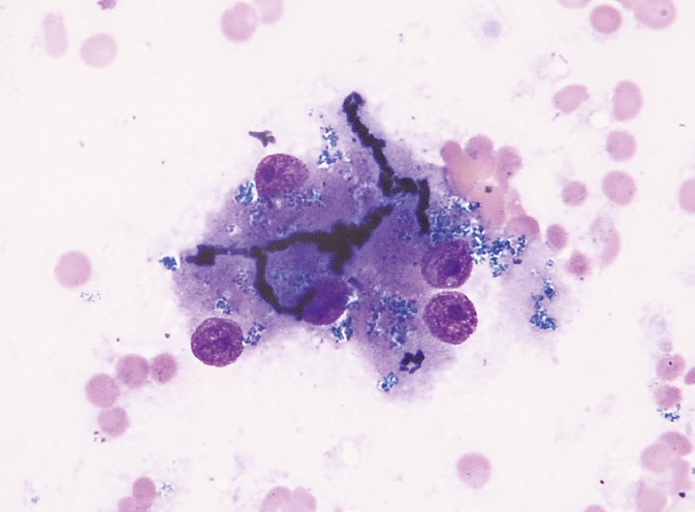
铜中毒的诊断基于肝铜的总量。在初始阶段,积聚通常涉及小叶中心,随后涉及中间带部分,尽管所有肝细胞都可能受到影响。最终,通过电感耦合等离子体原子发射光谱法 (ICP-AES) 调查的肝铜值信息量最大 [15, 16]。通过这种方法,易感品种的平均肝脏浓度为 1274 μg/g(563.0–1773.0),非易感品种为 542.2 μg/g (270.3–862.3),这似乎与肝炎相关 [16]。
铜通过胆汁排出,在胆汁淤积继发和慢性肝炎病例中可能会看到少量的铜 [8, 17]。根据其他数据,犬的胆汁淤积似乎不会增加铜的积聚 [18]。在这种情况下,铜积聚是原发性的还是继发于慢性炎症、纤维化或胆汁淤积仍有待确定 [19]。细胞学可以估计受影响肝细胞的比例,但很明显,只有通过组织学调查精确指示铜积聚的位置,才能有效地识别肝细胞中铜潴留的程度。因此,除了识别细胞质中可疑物质(表现为数量不等的不规则水绿色颗粒)外,细胞学检查没有其他诊断应用。
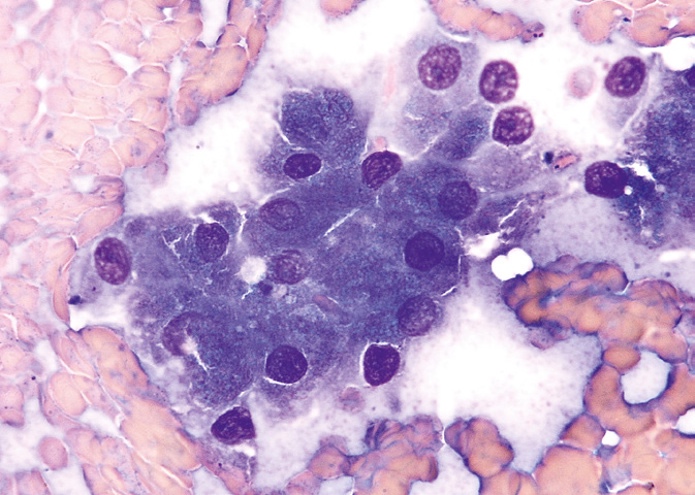
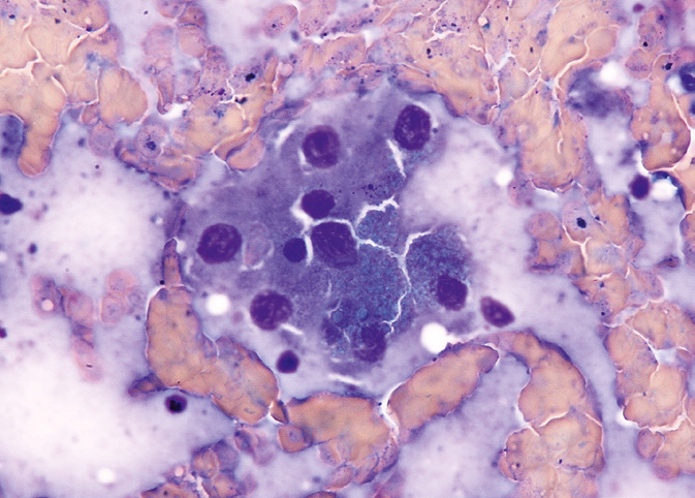
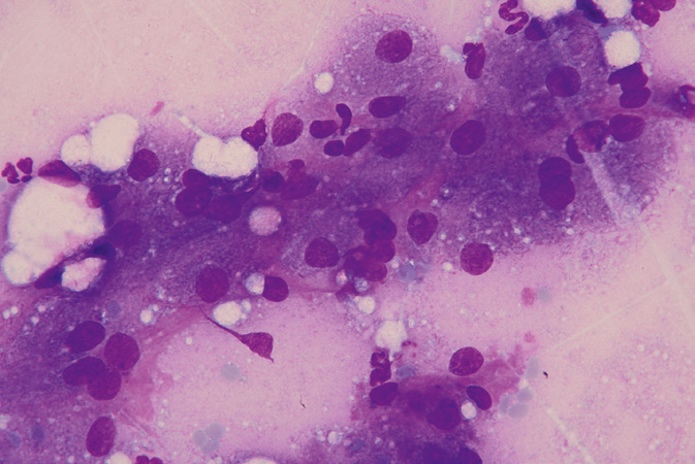
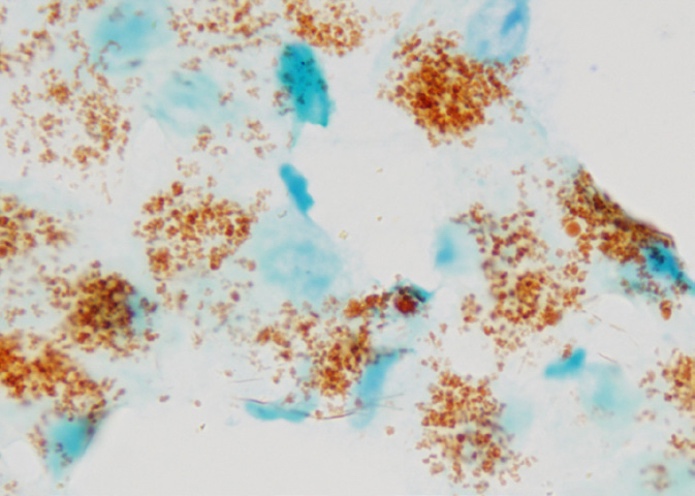
常规细胞学染色可能无法有效识别细胞质铜,因此必须应用特殊染色,如广泛认为更可靠且简单的罗丹宁 (rhodanine) 或红氨酸 (rubeanic acid) [8, 20]。细胞质铜-蛋白复合物用红氨酸染色呈蓝绿色至绿黑色,用罗丹宁染色呈亮橙红色。这允许确认细胞质铜的存在,并有机会进行半定量评估 [21]。地衣红 (Orcein) [22] 和 Timm's 硫化银染色 [23] 也被用于识别铜,尽管尚未发表关于细胞学样本的数据。
4.1.3 铁和含铁血黄素 (Iron and Hemosiderin)
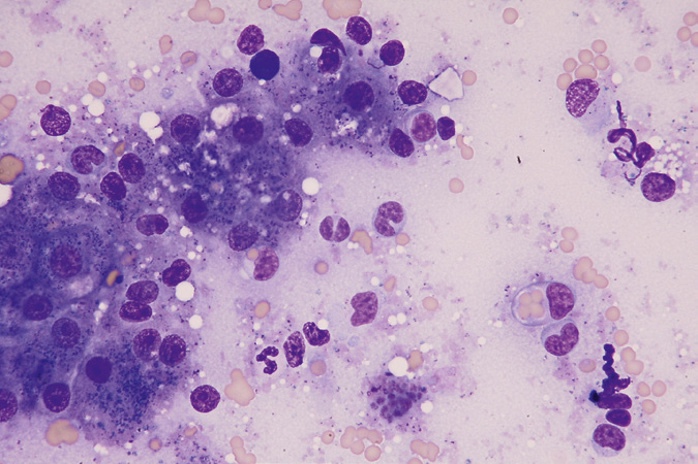
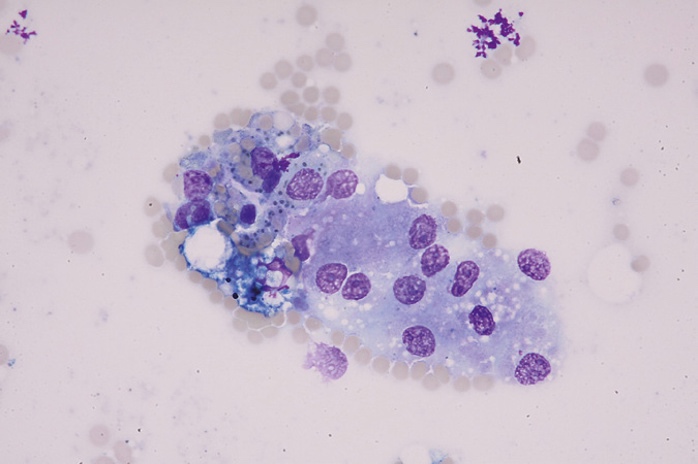
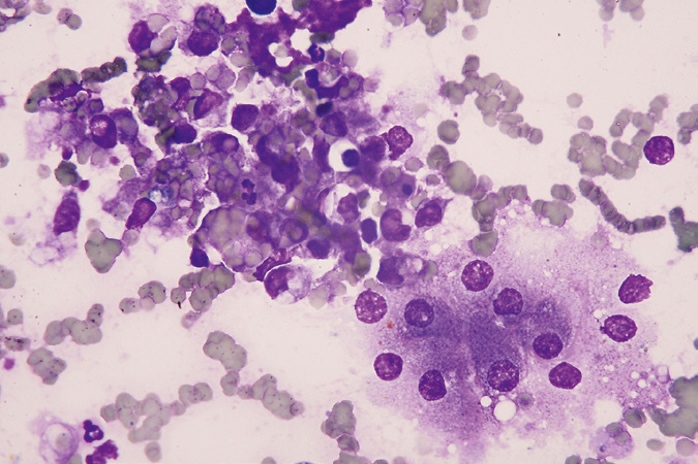
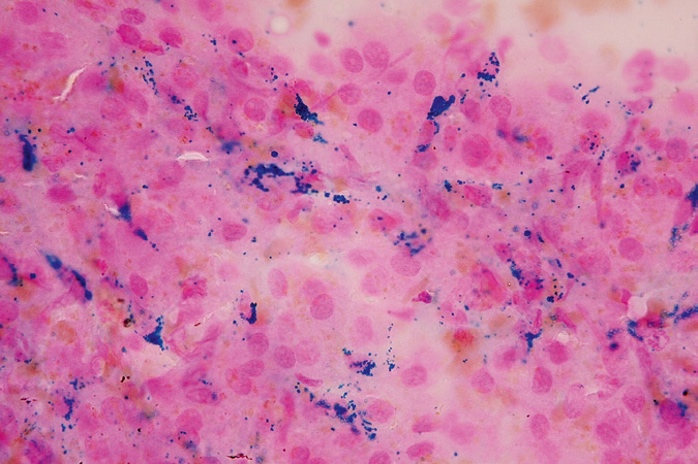
细胞形态学:存在粗糙、致密、有时成团的细胞质颗粒,主要积聚在活化的库普弗细胞的细胞质中;颜色从金褐色到蓝黑色不等(图 4.11-4.14);可能在肝细胞细胞质中观察到类似物质的积聚(图 4.15)。
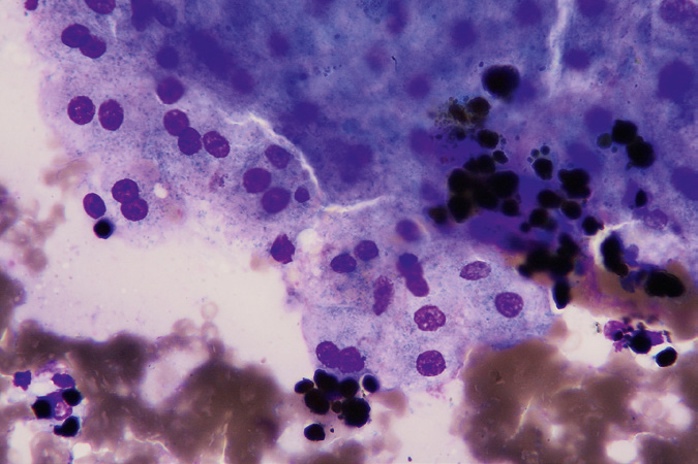
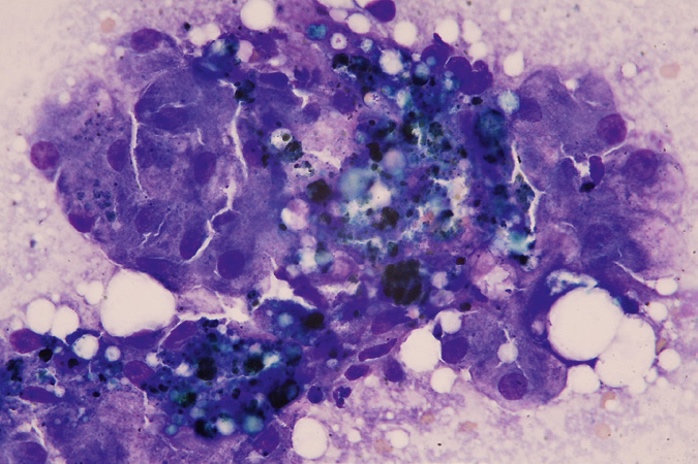
这种细胞质物质由库普弗细胞产生,因为它们消化红细胞中包含的血红蛋白,当红细胞由于衰老、免疫介导的破坏、红细胞感染、充血或出血状况而离开血管腔时,会被吞噬(图 4.16 和 4.17);普鲁士蓝染色有助于识别铁色素,其外观为亮蓝色(图 4.18)。小叶中心和窦状充血(例如由静脉流出改变引起,如右心衰竭或慢性心肌病 [24],或作为机械性肝外阻塞或不完全阻塞的结果,例如肿瘤 [25])也可能随后发生红细胞停滞,这些红细胞可能被库普弗细胞清除和破坏。
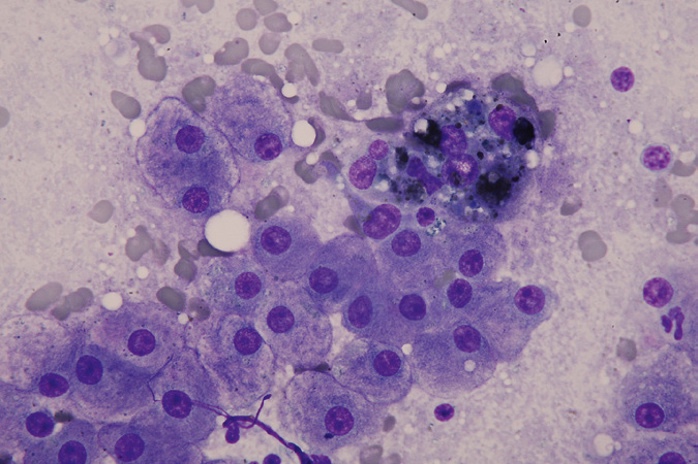
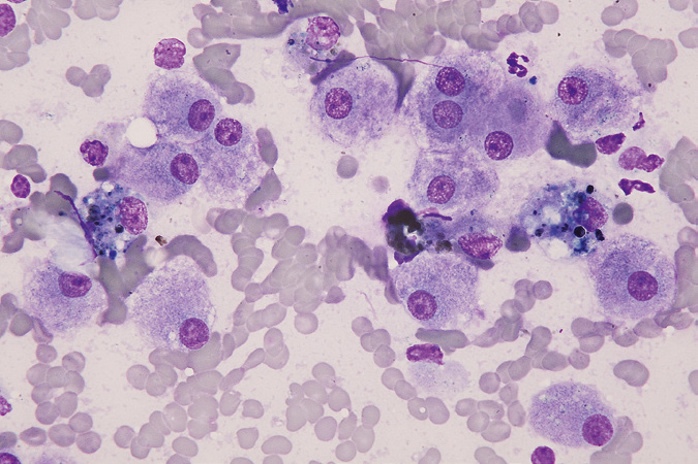
红细胞吞噬作用或含铁血黄素沉着的常见原因包括慢性疾病贫血或慢性肝炎 [2]。与脾脏类似,肝脏是一个红细胞破坏器官(hemocatheretic organ),因此红细胞含铁血黄素吞噬事件也可能作为免疫介导的溶血事件(红细胞破坏的最常见原因)的结果而发生,而这反过来又是由原发原因引起的 [26]。红细胞破坏的原因还包括继发性血色病的溶血性贫血,这在犬中有描述 [27],其中含铁血黄素颗粒积聚发生在库普弗细胞和肝细胞的细胞质中。巨噬细胞进行的红细胞破坏有时可能与肝实质的慢性炎症状况有关,可能是局灶性坏死、实质微出血和巨噬细胞清除的结果。导致慢性贫血的红细胞破坏以及给予铁基化合物或重复输血是其他可能的原因 [28]。
一种非常罕见的疾病,称为红细胞生成性原卟啉症 (erythropoietic protoporphyria),是由原卟啉过量引起的,原卟啉通常参与血红素合成。原卟啉在血红素生物合成途径中从酶亚铁螯合酶接受 Fe⁺⁺ 离子,但由于亚铁螯合酶活性部分缺乏而积聚。原卟啉释放到血浆中并被肝脏和血管内皮摄取。原卟啉在毛细胆管和小叶间胆管中可识别为深褐色色素,在严重病例中也可在库普弗细胞中识别;在偏振光下观察时,它具有特征性的马耳他十字形状。色素沉积可能导致慢性肝炎和肝硬化。
这种情况可以是获得性的,可能是由于使用灰黄霉素等药物或用于治疗关节炎的药物 (3-[2-(2, 4, 6 三甲基苯基)-硫乙基]甲基悉尼酮 – TTMS) [2];然而,也有迹象表明与抗精神病药物有关,尽管仅在实验水平上 [29]。在一组 17 只犬(德国牧羊犬,属于同一饲养员)中观察到一种短暂的原卟啉症,可能是由于接触了具有致卟啉作用和抑制亚铁螯合酶活性的未知物质 [30]。
最后,除了描述的外源性原因外,还描述了一种先天性原卟啉症 [31]。
4.1.4 蛋白滴 (Protein Droplets)
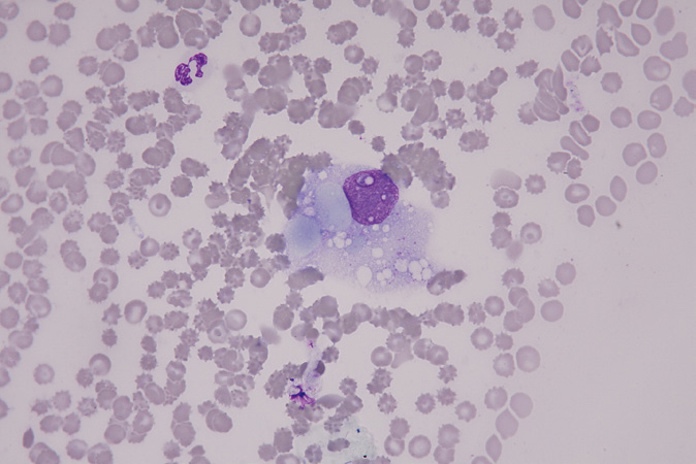
细胞形态学:弱嗜碱性的透明小球,具有不规则圆形或多边形轮廓和细胞质积聚,倾向于使细胞核变形并置换其他球状无色物质(图 4.19)。
描述为休克事件、缺血的后果或与肝细胞损伤相关,这是一种罕见的情况。原因尚不清楚,但一种理论是它是由血浆来源的蛋白质积聚引起的;另一种解释是内质网 (ER) 功能的改变可能导致未折叠或错误折叠蛋白质的积聚,这种细胞状况称为内质网应激 [32]。我个人在一例肝细胞癌病例中观察到了它 [33]。
4.1.5 细胞质颗粒状嗜酸性物质
细胞形态学:大小不等的小颗粒状嗜酸性小球(图 4.20),有时聚结成轮廓不规则的聚集体(图 4.21-4.23)。
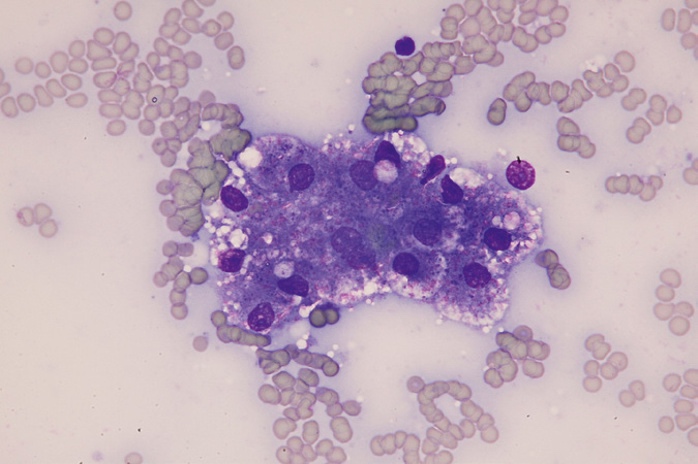
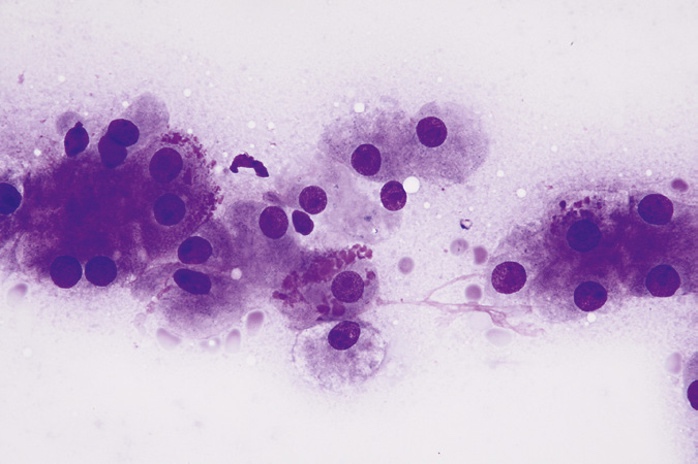
在人类医学中,已知一些不同的情况;积聚在细胞质中的嗜酸性颗粒可能以大球(主要是马洛里-登克小体/Mallory–Denk bodies)和微球(α-1-抗胰蛋白酶、α-1-甲胎蛋白、触珠蛋白或 α-巨球蛋白的积聚)为代表,有时也在患有慢性肝病的犬中观察到。在大球中,马洛里-登克小体是不规则的、致密的细胞质包涵体,具有细胞角蛋白成分,通常呈股状或花环状,有时在细胞核周围形成环;电子显微镜显示马洛里-登克小体是与中间丝结合的蛋白质聚集体;在人类中,马洛里-登克小体的存在与许多情况有关,包括变性改变、慢性胆汁淤积、药物诱导的损伤、癌前病变以及良性和恶性肝细胞肿瘤 [34]。尽管尚不清楚马洛里-登克小体是起旁观者、保护性还是促进损伤的作用,但它们在人类的几种肝脏疾病中作为组织学和潜在的进展标志物具有重要作用。虽然以前从未在兽医细胞学中描述过,但个人观察表明,在犬的肝脏中观察到了具有与马洛里-登克小体相同形态特征的嗜酸性小体。
在微球中,长期以来人们都知道 α-1-抗胰蛋白酶 (AAT) 缺乏会导致人类肝硬化。AAT 是一种丝氨酸蛋白酶抑制剂,可阻断许多蛋白酶的酶活性 [35];该缺陷是 AAT(通常在肝脏中产生)无法分泌到血液中,因此积聚在肝细胞内,导致慢性损伤 [36]。同样的机制是否发生在犬身上尚不确定,尽管以前已经描述过 AAT [37]。
在犬和猫中,嗜酸性小球的细胞学识别很容易。没有具体的病理条件可以解释这些极为罕见的物质的积聚,尽管应考虑慢性炎症状况。小的嗜酸性小球的存在并不排除肝肿瘤,因为已在高分化肝细胞癌的肝细胞细胞质中发现了少量的这种小球 [9]。
其他细胞质包涵体可能是肝细胞吞噬凋亡小体的结果 [38],尽管文献中没有细胞学描述。
4.1.6 肝脏溶酶体贮积病
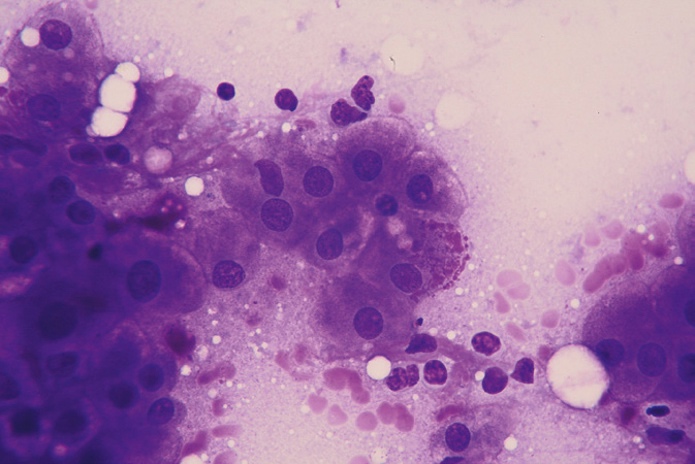
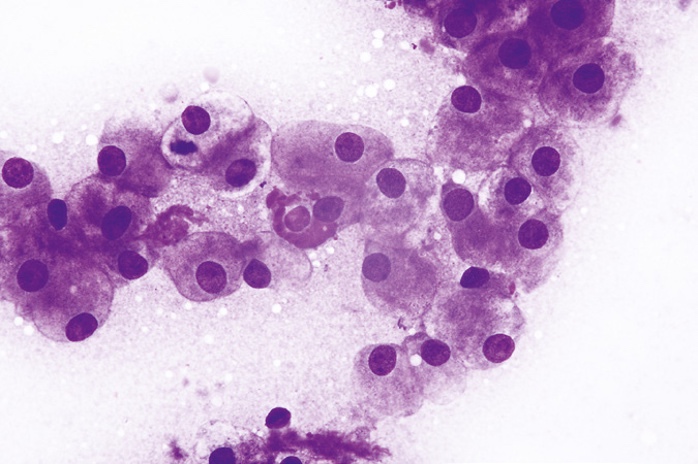
这是一组非常罕见的疾病,可能与遗传性或有时获得性的代谢酶缺陷有关。溶酶体贮积是指一种细胞改变,其中通常被降解的物质在细胞的溶酶体内积聚量增加,通常导致细胞死亡。该疾病被认为是由于突变导致溶酶体酶合成减少所致。最常见的发现是肝细胞和/或库普弗细胞中存在清晰的真性空泡,有时含有透明、颗粒状或色素颗粒;这种变化是由于岩藻糖、神经节苷脂、糖基神经酰胺、粘多糖 [39]、鞘磷脂、未酯化胆固醇和其他因子的积聚所致。文献中没有细胞学特征的描述,但每当观察到肝细胞细胞质中存在无法解释的小球证据时,就应该产生怀疑;这种疾病可能与其他细胞(如脑细胞或循环血细胞)中的类似变化有关。
4.2 胞浆外病理性积聚
4.2.1 胆汁 (Bile)
细胞形态学:线状或分枝状管型,跟随肝细胞细胞膜的轮廓,颜色为深绿蓝色至蓝黑色(图 4.24);经常与可逆性非特异性肝细胞损伤相关,表现为脂褐素(图 4.25)、水、糖原或脂质(图 4.26)的积聚;有时与吞噬从小管释放的胆汁的巨噬细胞相关(图 4.27)。也可能有数量不等的炎症细胞,通常与原发原因有关(图 4.28)。
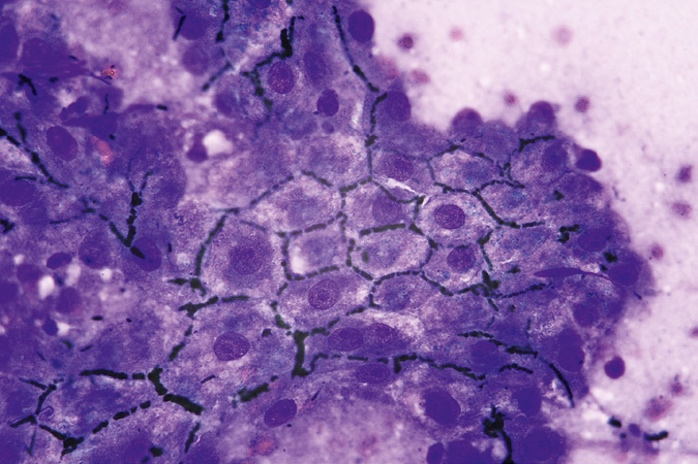
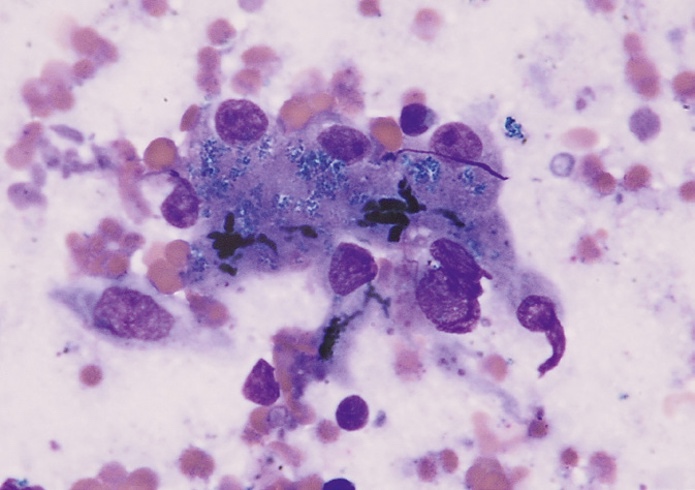
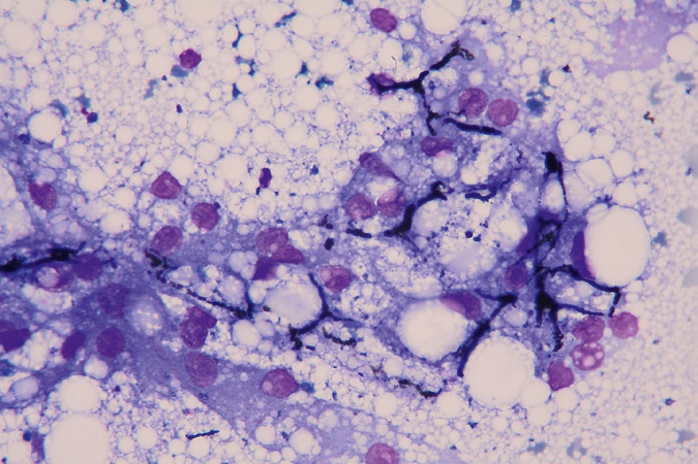
在组织学上识别胞浆外胆汁淤积(特征是肝细胞之间存在淡绿色胆汁物质的线状或分枝状管型)可能很困难(图 4.29)。相反,检测胆汁的胞浆外积聚是评估肝脏细胞学制片的一个相当令人满意的时刻,因为它提供了关于胆汁本身流出改变的清晰、简单和无可辩驳的(特别是当广泛和丰富时)信息。在肝细胞细胞质中代谢的胆红素和胆汁酸由跨膜载体蛋白转移到毛细胆管中。后者是位于两个相邻肝细胞板之间的非常薄的细胞间腔,只有当它们在胆汁淤积期间扩张时才能在组织学上进行评估。通过这些腔,胆汁逆血流方向流动,从小叶中心段流向门静脉段,到达称为 Hering 管的短段,最后到达汇管区中越来越大的小叶间胆管、大的肝外导管、胆囊、胆总管和以十二指肠乳头为代表的肠道出口。任何阻碍胆汁正常流出的肝内或肝外阻塞情况都可能导致胆汁淤积——从肝细胞肿胀(如脂质沉积症)到胆道阻塞。任何机械性肝外阻塞,特别是肿块、淋巴结肿大、胆结石、寄生虫、原发性或继发性胆道疾病或十二指肠乳头闭塞,必须通过放射学或超声检查进行调查。
应注意的是,阻塞的原因可能局限于胆道或肝实质的特定或局灶区域,如局灶性肿瘤;在这些情况下(仅涉及肝脏的特定区域),只有从受累的实质段进行采样,胆汁淤积的细胞学调查才能成功。
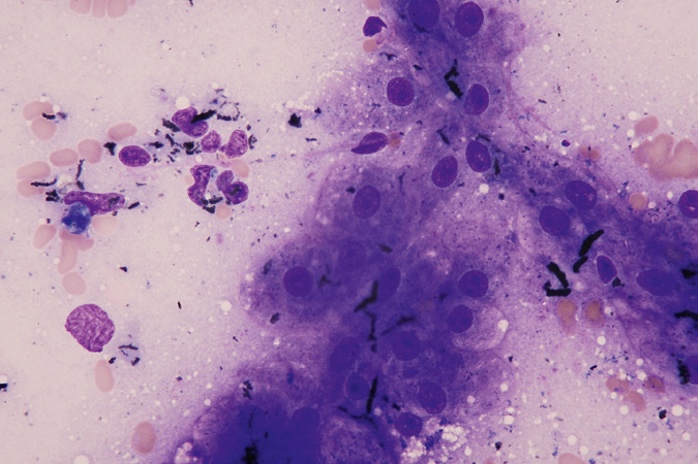
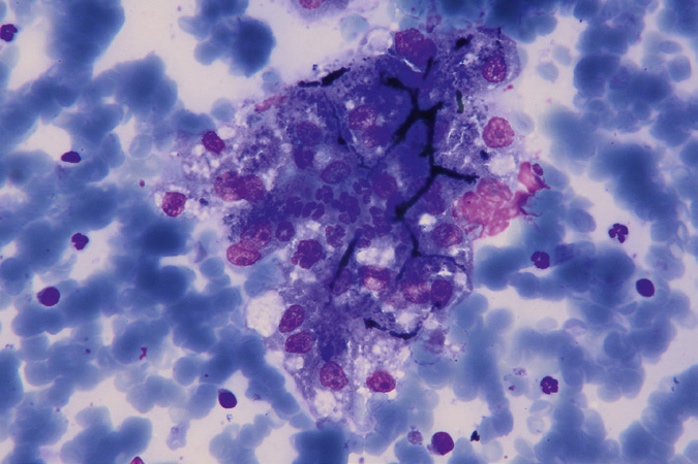
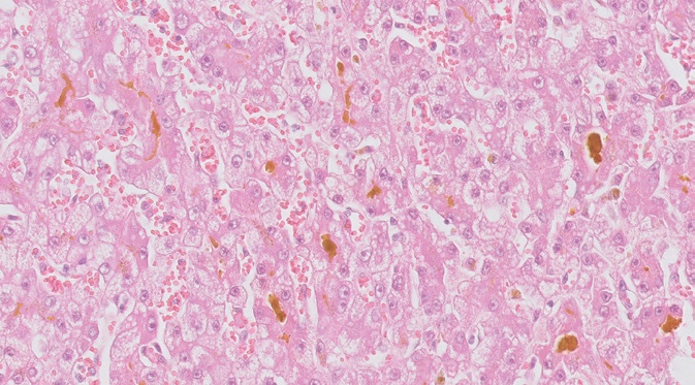
在以下情况下,通常(且容易)观察到涉及整个实质的全身性胆汁淤积:
- 如果阻塞性损伤位于大的末端导管,如在肺门淋巴结肿大的情况下,或者存在肝脏或肝外肿瘤肿块或主要胆管腔闭塞。
- 如果有结石,或在胆囊囊性粘液性增生过程中,如果粘液阻塞胆总管。
- 如果十二指肠乳头闭塞,通常是在肠粘膜严重炎症、肿瘤或存在异物的过程中。
还应注意,机械性闭塞可能不可见,胆汁淤积事件可能是由于肝细胞明显肿胀引起的,例如在严重的非特异性和可逆性损伤之后 [40]。
胆汁淤积的其他原因可能包括一种暴发性肝炎、亚急性或慢性肝炎伴肝硬化,或由溶血性贫血诱导,这不仅增加了胆红素合成的负荷,而且由于缺氧和小叶中心坏死而损害了肝细胞的功能 [41]。在这些情况下,胆汁淤积最可能的原因与破坏小管流出系统正常微结构的病理过程引起的扰动有关。同样,许多伴有胆汁淤积的肝炎是由病毒、细菌或寄生虫病原体诱导的——在接下来的章节中进一步讨论。
因此,胆汁淤积的细胞学证据是非特异性的,检测到它应该激活所有的临床调查。关于严重贫血和肝特异性酶(指示肝损伤或功能不全)的血液学数据,以及影像学调查,都有助于确定胆汁流动中断的部位和原因。
4.2.2 淀粉样蛋白 (Amyloid)
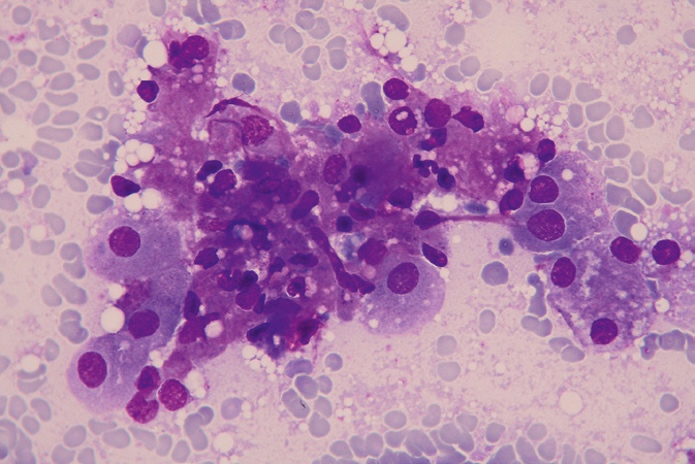
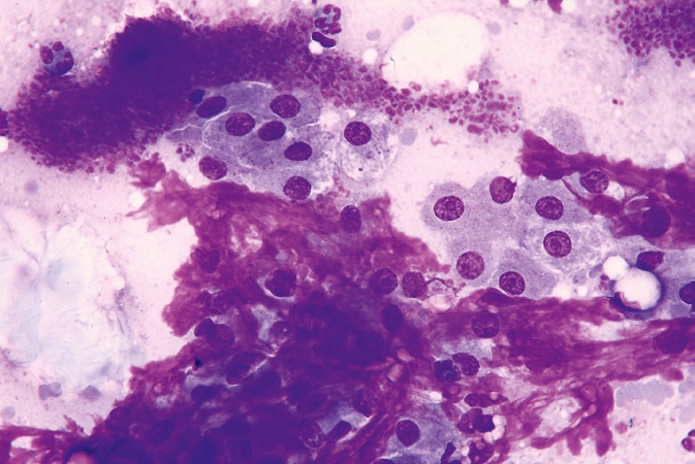
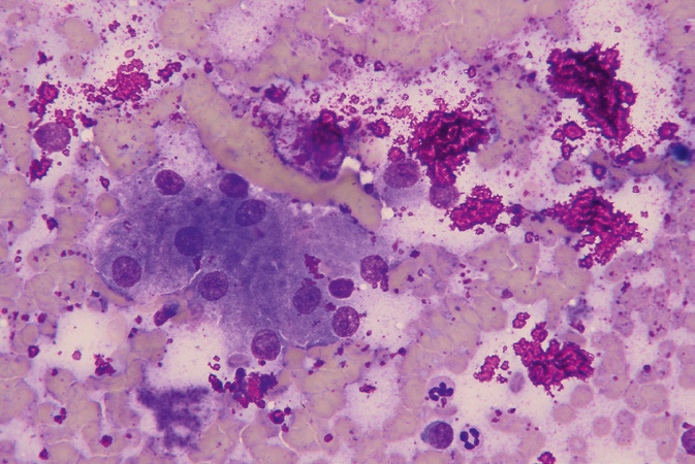
细胞形态学:存在嗜酸性、致密的纤维状物质,呈不同厚度的簇和束,积聚在肝细胞聚集体之间(图 4.30)。这种物质可能会破坏上皮片并积聚在涂片的背景上;可能与慢性轻度、主要是组织细胞性炎症相关(图 4.31)。可以观察到巨噬细胞对淀粉样蛋白的吞噬作用(图 4.32);肝细胞通常看起来正常(图 4.33)。
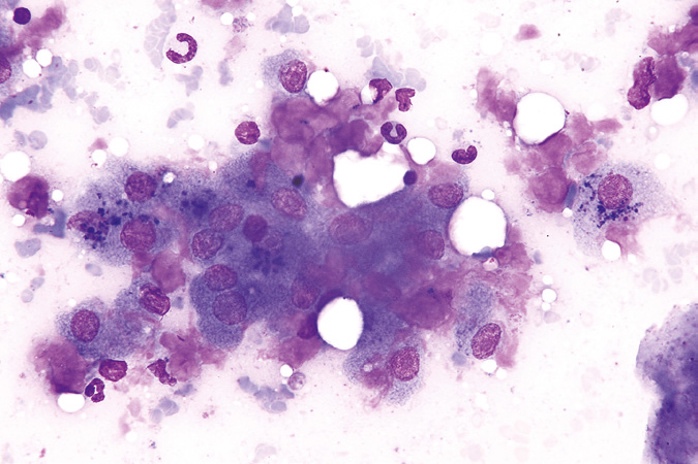
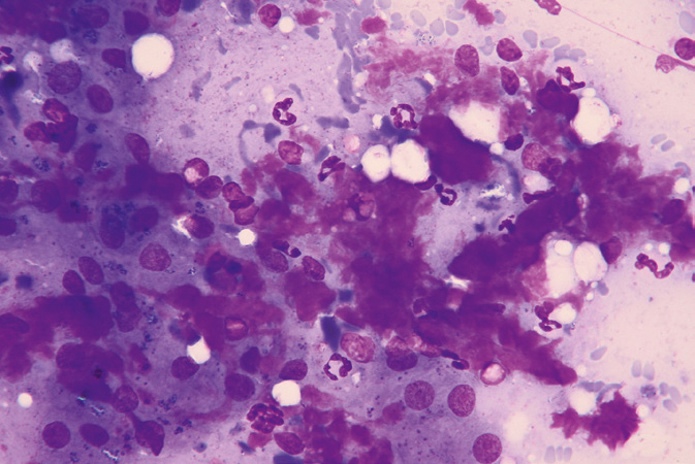
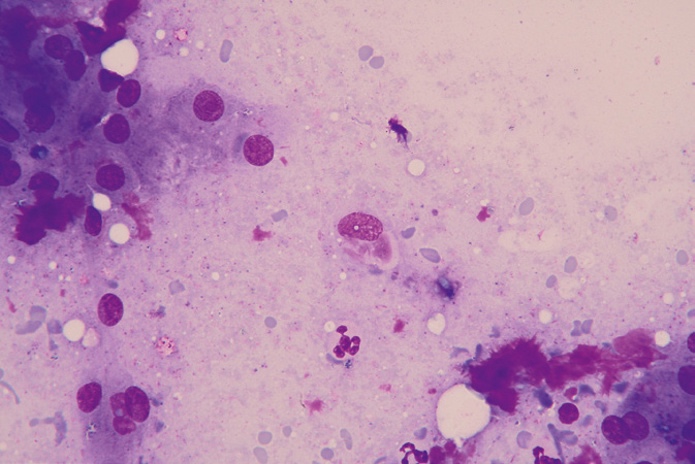
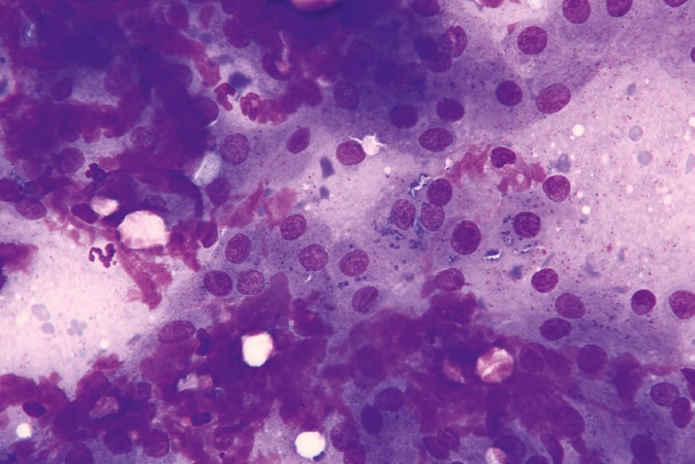
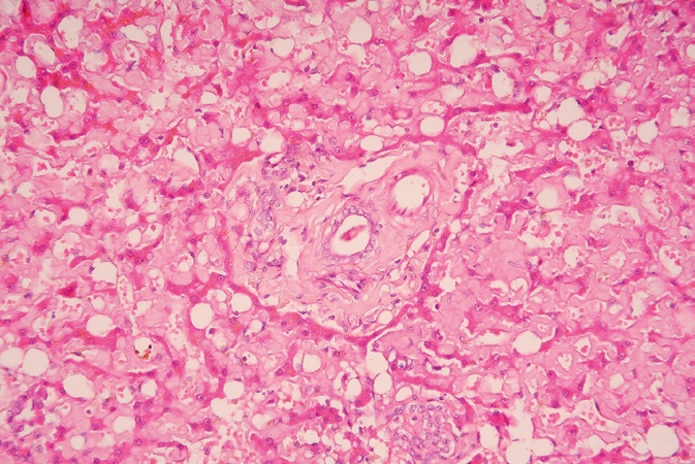
在书籍或专业评论中经常指出,只有使用特殊染色并在偏振光下观察才能识别淀粉样蛋白。我个人认为这些调查在实际诊断的背景下是多余的,因为这种物质的形态特征(如前所述)及其丰富的数量使得识别这一过程相当容易。缺乏经验的细胞学家可能必须学会区分淀粉样蛋白与蛋白质碎片,如无定形的嗜酸性或嗜碱性物质(图 4.34),特别是血小板聚集体(图 4.35),这可以根据其微粒特征进行识别。在没有特殊染色的组织学切片中,淀粉样蛋白可能难以识别(图 4.36)。
还建议将淀粉样蛋白与肝纤维化区分开来,后者往往具有特殊的形态特征(图 4.37),如第 8 章所述。事实上,梭形细胞如果嵌入纤维基质束中,可能类似于淀粉样蛋白的局灶性沉积。另一种需要与淀粉样蛋白区分的常见伪影是用于超声检查的凝胶在肝细胞间的人为分布(图 4.38)。
淀粉样蛋白是一种由折叠成 β-折叠片层的肽形成的蛋白质,具有以致密原纤维为特征的结构。已知有几种蛋白质前体,但肝脏局部的淀粉样蛋白沉积通常包括由轻链蛋白产生的淀粉样蛋白 (AL 淀粉样蛋白) 或由肝细胞直接合成的蛋白质产生的淀粉样蛋白 (AA 淀粉样蛋白)。AA 淀粉样蛋白产生于一种急性期蛋白,当由于慢性炎症过程产生病理量时,这种蛋白倾向于以折叠片的形式积聚,主要积聚在狄氏隙的间质区域,但也积聚在血管壁、肾实质的间质或肾小球中,有时积聚在脾实质(血管内或血管周围)中。与慢性肝外炎症性疾病的关联——应通过详细的临床和病史研究进行评估,在猫中可能通过比较血清淀粉样蛋白 (SAA) 的剂量水平进行评估——应始终被视为淀粉样变性最可能的原因,特别是当炎症状况难以证明时 [42]。
淀粉样蛋白积聚也可能由于遗传易感性而发生,在猫中,主要见于阿比西尼亚猫和暹罗猫品种,在犬中,见于沙皮犬或松狮犬。然而,在存在慢性炎症疾病的情况下,任何品种都可能受到影响。在猫中,淀粉样变性不仅限于特定品种,在短毛家猫和德文卷毛猫中也有描述 [43, 44]。在一些罕见的情况下,淀粉样蛋白由肿瘤性浆细胞沉积,这是蛋白质过量产生的结果,如在一只患有髓外浆细胞瘤的猫中所报道的那样 [45]。
4.3 关键点
- 脂褐素虽然被认为是极轻微的细胞质变化,但通常存在于肝细胞细胞质内,无论数量多少。
- 当通过肝细胞细胞质中铜积聚的细胞学证据怀疑铜中毒时,必须始终通过组织学和组织化学方法进行确认。
- 铁和含铁血黄素积聚是常见发现;当存在时,首先考虑肝脏红细胞破坏活动增加,这是红细胞周转的结果。
- 肝细胞间的胆汁管型积聚是评估胆汁淤积的可靠方法;当存在时,首先考虑胆汁流动阻塞的原因。
- 细胞学特征对淀粉样变性具有特异性;当存在时,无需进一步调查。
References
[1] Goldfischer, S. and Bernstein, J. (1969). Lipofuscin (aging) pigment granules of the newborn human liver. J. Cell Biol. 42 (1): 253–261.
[2] Van Winkle, T., Ullen, J.M., van den Ingh, T.S.G.A.M. et al. (2006). Morphological classification of parenchymal disorders of the canine and feline liver – hepatic abscess and granulomas, hepatic metabolic storage disorders and miscellaneous conditions. In: Standard for Clinical and Histological Diagnosis of Canine and Feline Liver Disease (ed. WSAVA Liver Standardization Group), 106–109. St Louis, MO: Saunders.
[3] Hayes, A.M. (2004). Pathophysiology of the liver. In: Veterinary Pathophysiology (ed. R. Dunlop and C. Malbert), 382. Ames, IA: Blackwell Publishing.
[4] Warren, C.D. and Alroy, J. (2000). Morphological, biochemical and molecular biology approaches for the diagnosis of lysosomal storage diseases. J. Vet. Diagn. Invest. 12 (6): 483–496.
[5] Schneider, P. (1992). Drug-induced lysosomal disorders in laboratory animals. New substances acting on lysosomes. Arch. Toxicol. 62: 23–33.
[6] Perman, V., Alasker, R.D., and Riis, R.C. (1979). Cytology of the Dog and Cat, 152–153. South Bend, IN: American Animal Hospital Association.
[7] Scott, M. and Buriko, K. (2005). Characterization of the pigmented cytoplasmic granules common in canine hepatocytes. Vet. Clin. Pathol. 34 (suppl): 281–282.
[8] Arndt, T.P. and Shelly, S.M. (2014). The liver. In: Diagnostic Cytology of the Dog and Cat, 4e (ed. A.C. Valenciano and R.L. Cowell), 354–371. St Louis, MO: Elsevier Mosby.
[9] Masserdotti, C. and Drigo, M. (2012). Retrospective study of cytologic features of well-differentiated hepatocellular carcinoma in dogs. Vet. Clin. Pathol. 41 (3): 382–390.
[10] Meyer, D.K. (2016). The liver. In: Canine and Feline Cytology – A Color Atlas and Interpretation Guide, 3e (ed. R.E. Raskin and D.J. Meyer), 259–283. St Louis, MO: Elsevier.
[11] Forman, O.P., Boursnell, M.E.G., Dunmore, B.J. et al. (2005). Characterization of the COMMD1 (MURR1) mutation causing copper toxicosis in Bedlington terriers. Anim. Genet. 36 (6): 497–501.
[12] Wu, X., den Boer, E.R., Vos-Loohuis, M. et al. (2020). Investigation of genetic modifiers of copper toxicosis in Labrador retrievers. Life 10 (11): 266.
[13] Rodrigues, A., Leal, R.O., Girod, M. et al. (2020). Canine copper-associated hepatitis: a retrospective study of 17 clinical cases. Open Vet. J. 10 (2): 128–134.
[14] Whittemore, J.C., Newkirk, K.M., Reel, D.M., and Reed, A. (2012). Hepatic copper and iron accumulation and histologic findings in 104 feline liver biopsies. J. Vet. Diagn. Invest. 24 (4): 656–661.
[15] Smedley, R., Mullaney, R., and Rumbeiha, W. (2009). Copper-associated hepatitis in Labrador retrievers. Vet. Pathol. 46 (3): 484–490.
[16] Jaimie, M., Strickland, J.M., Buchweitz, J.P. et al. (2018). Hepatic copper concentrations in 546 dogs (1982–2015). J. Vet. Intern. Med. 32 (6): 1943–1950.
[17] Spee, B., Arends, B., van den Ingh, T.S. et al. (2006). Copper metabolism and oxidative stress in chronic inflammatory and cholestatic liver diseases in dogs. J. Vet. Intern. Med. 20 (5): 1085–1092.
[18] Azumi, N. (1982). Copper and liver injury – experimental studies on the dogs with biliary obstruction and copper loading. Hokkaido Igaky Zasshi 57 (3): 331–349.
[19] Van den Ingh, T.S.G.A.M., van Winkle, T., Cullen, J.M. et al. (2006). Morphological classification of parenchymal disorders of the canine and feline liver – hepatocellular death, hepatitis and cirrhosis. In: Standard for Clinical and Histological Diagnosis of Canine and Feline Liver Disease (ed. WSAVA Liver Standardization Group), 85–101. St Louis, MO: Saunders.
[20] Russell Moore, A., Medrano, E., Coffey, E., and Powers, B. (2019). Clinicopathological correlation and prevalence of increased copper in canine hepatic cytology. J. Am. Anim. Hosp. Assoc. 55 (1): 8–13.
[21] Moore, A.R., Coffey, E., and Hamar, D. (2016). Diagnostic accuracy of Wright Giemsa and rhodanine stain protocols for detection and semi-quantitative grading of copper in canine liver aspirates. Vet. Clin. Pathol. 45 (4): 689–697.
[22] Salaspuro, M. and Sipponen, P. (1976). Demonstration of an intracellular copper-binding protein by orcein staining in long-standing cholestatic liver diseases. Gut 17 (10): 787–790.
[23] Hultgren, B.D., Stevens, J.B., and Hardy, R.M. (1986). Inherited, chronic, progressive hepatic degeneration in Bedlington terriers with increased liver copper concentrations: clinical and pathologic observations and comparison with other copper-associated liver diseases. Am. J. Vet. Res. 47 (2): 365–377.
[24] Van den Ingh, T.S.G.A.M., Rothuizen, J., and Meyer, H.P. (1995). Circulatory disorders of the liver in dogs and cats. Vet. Q. 17 (2): 70–76.
[25] Rollois, M., Ruel, Y., and Besso, J.G. (2003). Passive liver congestion associated with caudal vena caval compression due to oesophageal leiomyoma. J. Small Anim. Pract. 44 (10): 460–463.
[26] Garden, O.A., Kidd, L., Mexas, A.M. et al. (2019). ACVIM consensus statement on the diagnosis of immune-mediated hemolytic anemia in dogs and cats. J. Vet. Intern. Med. 33 (2): 313–334.
[27] Gultekin, G.I., Raj, K., Foureman, P. et al. (2012). Erythrocytic pyruvate kinase mutations causing hemolytic anemia, osteosclerosis, and secondary hemochromatosis in dogs. J. Vet. Intern. Med. 26 (4): 935–944.
[28] Sprague, W.S., Hackett, T.B., Johnson, J.S. et al. (2003). Hemochromatosis secondary to repeated blood transfusions in a dog. Vet. Pathol. 40 (3): 334–337.
[29] Greijdanus-van der Putten, S.W.M., van Esch, E., Kamerman, J. et al. (2005). Drug-induced protoporphyria in beagle dogs. Toxicol. Pathol. 33 (6): 720–725.
[30] Veldhuis Kroeze, E.J.B., Zentek, J., Edixhoven-Bosdijk, A. et al. (2006). Transient erythropoietic protoporphyria associated with chronic hepatitis and cirrhosis in a cohort of German shepherd dogs. Vet. Rec. 158 (4): 120–124.
[31] Kunz, B.C., Center, S.A., Randolph, J.F. et al. (2020). Congenital erythropoietic protoporphyria and protoporphyric hepatopathy in a dog. J. Am. Vet. Med. Assoc. 257 (11): 1148–1156.
[32] Hetz, C. (2012). The unfolded protein response: controlling cell fate decisions under ER stress and beyond. Nat. Rev. Mol. Cell Biol. 13 (2): 89–102.
[33] Masserdotti, C., Rossetti, E., de Lorenzi, D. et al. (2014). Characterization of cytoplasmic hyaline bodies in a hepatocellular carcinoma of a dog. Res. Vet. Sci. 96 (1): 143–146.
[34] Kurtovich, E. and Limaiem, F. (2022). Mallory bodies. www.ncbi.nlm.nih.gov/books/NBK545300/ StatPearl Publishing, September, 12, 2022.
[35] Johnson, A.M. (2006). Amino acids, peptides and proteins. In: Tietz Textbook of Clinical Chemistry and Molecular Diagnostics (ed. C.A. Burtis, E.R. Ashwood, and D.E. Bruns), 550–551. St Louis, MO: Elsevier Saunders.
[36] Takeda, M. (1983). Atlas of Diagnostic Gastrointestinal Cytology. Tokyo, Japan: Igaku-Shoin.
[37] Sevelius, E., Andersson, M., and Jönsson, L. (1994). Hepatic accumulation of alpha-1-antitrypsin in chronic liver disease in the dog. J. Comp. Pathol. 111 (4): 401–412.
[38] Van Winkle, T., Cullen, J.M., van den Ingh, T.S.G.A.M. et al. (2006). Morphological classification of parenchymal disorders of the canine and feline liver – hepatic abcesses and granulomas, hepatic metabolic storage disorders and miscellaneous conditions. In: Standard for Clinical and Histological Diagnosis of Canine and Feline Liver Disease (ed. WSAVA Liver Standardization Group), 103–116. St Louis, MO: Saunders.
[39] Haskins, M.E., Otis, E.J., Hayden, J.E. et al. (1992). Hepatic storage of glycosaminoglycans in feline and canine models of mucopolysaccharidoses I, VI, and VII. Vet. Pathol. 29 (2): 112–119.
[40] Center, S.A., Guida, L., Zanelli, M.J. et al. (1993). Ultrastructural hepatocellular features associated with severe hepatic lipidosis in cats. Am. J. Vet. Res. 54 (5): 724–731.
[41] Rothuizen, J., van den Brom, W.E., and Fevery, J. (1992). The origins and kinetics of bilirubin in dogs with hepatobiliary and haemolytic diseases. J. Hepatol. 15 (1–2): 17–24.
[42] DiBartola, S.P. and Benson, M.D. (1989). The pathogenesis of reactive systemic amyloidosis. J. Vet. Intern. Med. 3 (1): 31–41.
[43] Beatty, J.A., Barrs, V.R., Martin, P.A. et al. (2002). Spontaneous hepatic rupture in six cats with systemic amyloidosis. J. Small Anim. Pract. 43 (8): 355–363.
[44] Neo-Suzuki, S., Mineshige, T., Kamiie, J. et al. (2017). Hepatic AA amyloidosis in a cat: cytologic and histologic identification of AA amyloid in macrophages. Vet. Clin. Pathol. 46 (2): 331–336.
[45] Carothers, M.A., Johnson, G.C., DiBartola, S.P. et al. (1989). Extramedullary plasmacytoma and immunoglobulin-associated amyloidosis in a cat. J. Am. Vet. Med. Assoc. 195 (11): 1593–1597.


