犬铜相关性慢性肝炎

关键词(KEYWORDS)
• 铜(copper) • Wilson 病(Wilson disease) • 肝炎(hepatitis) • 肝活检(liver biopsy) • D-青霉胺(D-penicillamine)
要点(KEY POINTS)
• 肝铜蓄积由遗传易感性与膳食铜摄入共同引起。
• 犬在肝酶升高或出现临床症状之前就已存在亚临床铜蓄积,确诊需要肝组织病理学检查及肝铜定量。
• 在某些犬种中,ATPase copper transporting alpha、ATPase copper transporting beta 和 copper metabolism domain containing 1 基因的突变会影响肝铜水平。
• 治疗包括减少膳食铜摄入,并根据 DNA 检测所提示的遗传易感性、患病动物个体情况及家族史,个体化地采用螯合治疗清除体内的铜。
• 在已证实突变与肝铜升高存在关联的犬种中,推荐采用针对 DNA 突变进行筛选的繁育策略。
缩略语(Abbreviations)
| 缩略语 | 英文全称 | 中文 |
|---|---|---|
| AAFCO | Association of American Feed Control Official | 美国饲料管理官方协会 |
| ACVIM | American College of Veterinary Internal Medicine | 美国兽医内科学院 |
| ALP | Alkaline phosphatase | 碱性磷酸酶 |
| ALT | Alanine aminotransferase | 丙氨酸氨基转移酶 |
| aPTT | Activated partial thromboplastin time | 活化部分凝血活酶时间 |
| ATOX1 | Antioxidant 1 copper chaperone | 抗氧化蛋白 1 铜伴侣 |
| ATP7A | ATPase copper transporting alpha | ATP 酶铜转运 α |
| ATP7B | ATPase copper transporting beta | ATP 酶铜转运 β |
| BA | Bile acids | 胆汁酸 |
| BUN | Blood Urea Nitrogen | 血尿素氮 |
| CCS | Copper chaperone for superoxide | 超氧化物歧化酶铜伴侣 |
| COMMD1 | Copper metabolism domain containing 1 | 含铜代谢结构域蛋白 1 |
| CCO | Cytochrome C Oxidase | 细胞色素 C 氧化酶 |
| COX17 | Cyclooxigenase 17 | 环氧合酶 17 |
| CP | Ceruloplasmin | 铜蓝蛋白 |
| CTR1 | Copper Transporter 1 | 铜转运蛋白 1 |
| CTR2 | Copper Transporter 2 | 铜转运蛋白 2 |
| dCytb | Duodenal cytochrome b | 十二指肠细胞色素 b |
| DMT1 | Divalent metal transporter 1 | 二价金属转运蛋白 1 |
| DPA | D-penicillamine | D-青霉胺 |
| DWL | dry weight liver | 肝脏干重 |
| GSH | Glutathione | 谷胱甘肽 |
| MD | Menkes disease | Menkes 病 |
| MT | Metallothionein | 金属硫蛋白 |
| OHS | Occipital Horn Syndrome | 枕角综合征 |
| PT | Prothrombin time | 凝血酶原时间 |
| ROS | Reactive Oxygen Species | 活性氧 |
| SMAX3 | X-linked distal spinal muscular atrophy type 3 | X 连锁远端脊髓性肌萎缩 3 型 |
| SOD1 | Superoxide dismutase 1 | 超氧化物歧化酶 1 |
| STEAP | Six-transmembrane epithelial antigen of the prostate | 前列腺六跨膜上皮抗原 |
| TEG | Thromboelastography | 血栓弹力图 |
| TGN | trans-Golgi network | 反式高尔基体网络 |
| USA | United States of America | 美国 |
| VCM | Viscoelastic coagulation monitor | 黏弹性凝血监测仪 |
| WD | Wilson disease | Wilson 病 |
| WHWT | West Highland White Terrier | 西高地白㹴 |
| XIAP | X-linked inhibitor of apoptosis protein | X 连锁凋亡抑制蛋白 |
引言:铜稳态与肝细胞铜代谢(INTRODUCTION: COPPER HOMEOSTASIS AND HEPATOCYTE COPPER METABOLISM)
铜稳态(Copper Homeostasis)
铜是一种必需微量元素,易于在不同氧化还原状态之间转换,因此是酶类重要的电子供体和电子受体[1]。这些酶被称为铜酶(cuproenzymes),参与胶原与弹性蛋白交联、铁代谢、细胞呼吸以及神经肽修饰等生命过程[1]。尽管铜具有重要的生理功能,但未结合的铜因其高反应性而对细胞具有毒性。这种反应性会导致活性氧(reactive oxygen species, ROS)生成,从而损伤脂质、蛋白质和 DNA[2,3]。因此,铜的摄取、分布和排泄受到严格调控[4]。
经膳食或饮水摄入的铜主要在小肠吸收[5]。在该部位,铜转运蛋白 1(copper transporter 1, CTR1)介导肠上皮细胞对铜的摄取,可能同时还有二价金属转运蛋白 1(divalent metal transporter 1, DMT1)和铜转运蛋白 2(copper transporter 2, CTR2)参与[6–10]。CTR1 特异性转运单价 Cu1+,并依赖金属还原酶将二价 Cu2+ 还原为单价 Cu1+,这类金属还原酶包括前列腺六跨膜上皮抗原(six-transmembrane epithelial antigen of the prostate, STEAP)和十二指肠细胞色素 b(duodenal cytochrome b, dCytb)[5,11,12]。
铜一旦进入肠上皮细胞,即与细胞内清除剂金属硫蛋白(metallothionein, MT)结合。铜经基底膜上的铜转运 ATP 酶 ATPase copper transporting alpha(ATP7A)转运出细胞,从而进入门静脉循环[13,14]。CTR1 和 ATP7A 在调节肠道铜吸收中均发挥关键作用。细胞内铜水平升高会触发 CTR1 内化以减少摄取,同时 ATP7A 转位至质膜以增强铜的外排[15]。
吸收后,铜主要与白蛋白结合进入门静脉循环,随后通过位于肝细胞基底外侧膜的 CTR1 被肝细胞摄取。肝脏是铜储存、向其他组织分配铜以及经胆道系统排泄过量铜的主要场所。少量过量铜也由肾脏排泄[4]。
肝细胞的铜代谢(Copper Metabolism of The Hepatocyte)
在肝细胞内,铜迅速被 MT[16] 和谷胱甘肽(glutathione, GSH)[17] 等铜清除剂隔离并储存。铜伴侣蛋白从 CTR1 和 GSH 获取铜,并将其递送至特定靶蛋白。铜伴侣蛋白环氧合酶 17(cyclooxygenase 17, COX17)将铜递送至线粒体内膜的细胞色素 C 氧化酶(cytochrome C oxidase, CCO),后者是细胞呼吸的关键酶[18]。超氧化物歧化酶铜伴侣(copper chaperone for superoxide, CCS)将铜递送至超氧化物歧化酶 1(superoxide dismutase 1, SOD1),后者保护细胞免受 ROS 损伤[19]。
在细胞内铜处于正常水平时,抗氧化蛋白 1 铜伴侣(antioxidant 1 copper chaperone, ATOX1)将铜递送至定位于反式高尔基体网络(trans-Golgi network, TGN)的 ATP7A 和 ATPase copper transporting beta(ATP7B)[20,21]。在肝细胞中,当外周铜缺乏时,ATP7A 可动员肝脏的铜储备[22]。在 TGN 内,ATP7B 将 6 个铜原子装载到铁氧化酶铜蓝蛋白(ceruloplasmin, CP)上,CP 随后释放入血流,将铜运输至外周组织[23–25]。CP 是体循环中主要的铜载体[26]。
当肝细胞内铜水平升高时,ATP7B 从 TGN 转位至溶酶体,以促进胆道铜排泄[27]。在此过程中,含铜代谢结构域蛋白 1(copper metabolism domain containing 1, COMMD1)作为 ATP7B 的伴侣蛋白发挥作用。COMMD1 还参与 ATP7A 和 ATP7B 的稳定与质量控制[28–31]。COMMD1 水平受 X 连锁凋亡抑制蛋白(X-linked inhibitor of apoptosis protein, XIAP)调控,XIAP 通过泛素化及蛋白酶体途径促进 COMMD1 降解。XIAP 本身也受细胞内铜水平调控:当铜与 XIAP 结合时,XIAP 发生构象改变并失稳,从而降低其对 COMMD1 的抑制作用,进而促进铜外排[32,33]。
当铜代谢受到干扰时,可发生铜储存障碍。铜过量与铜缺乏均可导致疾病。铜缺乏无论由膳食不足还是遗传因素引起,都会损害依赖铜的生理过程,如胶原与弹性蛋白交联以及细胞呼吸[34,35]。铜中毒(copper toxicosis)的特征是由未结合铜所致氧化应激引起的症状。由于肝脏是维持铜稳态的核心器官,肝铜蓄积并进而发展为肝炎是铜中毒的常见表现。如不治疗,可进展为肝硬化[2,3,36,37]。在本综述中,我们首先简要介绍人类的遗传性铜储存障碍,随后重点讨论犬铜中毒的病因、诊断与治疗(图 1)。
人类的铜代谢障碍(COPPER METABOLISM DISORDERS IN HUMANS)
Wilson 病(Wilson Disease)
Wilson 病(Wilson disease, WD)是人类的一种常染色体隐性遗传病,由 ATP7B 基因突变引起。ATP7B 蛋白功能丧失或降低导致肝脏及神经元铜蓄积。迄今为止,已鉴定出超过 900 种 ATP7B 致病性变异。患者常为复合杂合子,即 ATP7B 基因的两个拷贝各携带一种不同的致病突变[37]。临床表现多样,患者可表现为肝病和/或精神与神经症状。如不治疗,该病可因肝衰竭以及偶见的肝细胞癌而呈致死性病程[36]。发病年龄、治疗反应以及主要临床表现(神经系统或肝脏)随遗传背景及其他尚未明确的因素而异[36]。WD 的关键诊断标志包括血浆 CP 水平降低和尿铜排泄增加。常规治疗为螯合治疗,通常使用 D-青霉胺(D-penicillamine, DPA)[36]。
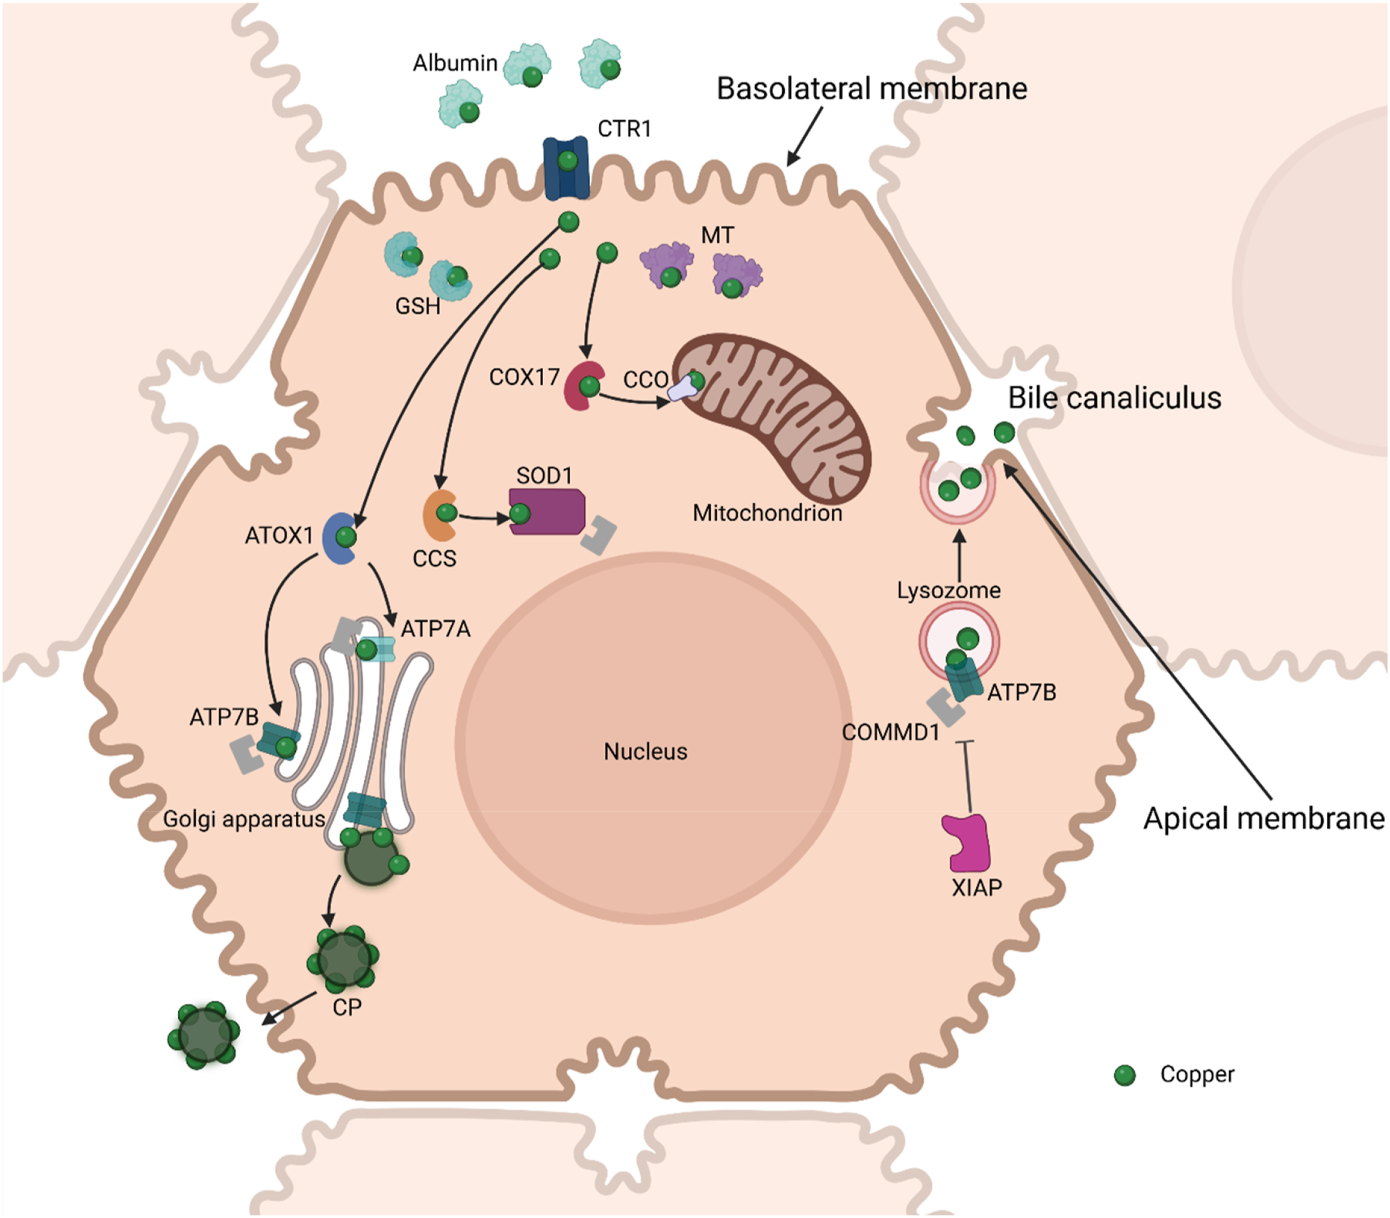
图 1. 肝细胞铜代谢示意图。铜(绿色小球)通过铜转运蛋白 1(CTR1)进入肝细胞。铜被铜清除剂金属硫蛋白(MT)和谷胱甘肽(GSH)隔离。铜伴侣蛋白环氧合酶(COX)17 将铜递送至线粒体内的细胞色素 C 氧化酶(CCO)。铜伴侣蛋白超氧化物歧化酶(CCS)将铜递送至超氧化物歧化酶(SOD1)。抗氧化蛋白 1 铜伴侣(ATOX1)将铜递送至位于反式高尔基体网络(TGN)的 ATP 酶铜转运 α(ATP7A)和 ATP 酶铜转运 β(ATP7B)。在 TGN 内,ATP7B 将铜原子装载至铜蓝蛋白(CP),CP 随后释放入血流。当肝细胞内铜水平升高时,ATP7B 从 TGN 转位至溶酶体,促进胆道铜排泄。在此过程中,含铜代谢结构域蛋白 1(COMMD1)作为 ATP7B 的伴侣蛋白发挥作用。COMMD1 还参与 ATP7A 和 ATP7B 的稳定与质量控制。COMMD1 水平受 X 连锁凋亡抑制蛋白(XIAP)调控。(使用 BioRender 绘制。)
非 Wilson 型铜中毒(Non-Wilsonian Forms of Copper Toxicosis)
人类还存在其他铜储存障碍,其致病基因尚未明确。这些疾病包括地方性蒂罗尔婴儿肝硬化(endemic Tyrolean infantile cirrhosis)[38]、印度儿童肝硬化(Indian childhood cirrhosis)[39] 和特发性铜中毒(idiopathic copper toxicosis)[40,41]。这些疾病主要以肝脏受累为表现。据推测,铜暴露与铜中毒遗传易感性之间的相互作用促成了这些疾病的发生。
Menkes 病及其他 ATPase Copper Transporting Alpha 相关疾病
位于 X 染色体上的 ATP7A 基因突变可导致 X 连锁隐性铜缺乏性疾病。突变类型决定患者发生 Menkes 病(Menkes disease, MD)、枕角综合征(occipital horn syndrome, OHS)还是 X 连锁远端脊髓性肌萎缩 3 型(X-linked distal spinal muscular atrophy type 3, SMAX3)。由严重影响 ATP7A 功能的突变引起的 MD,以严重神经功能损害、婴幼儿期生长发育迟滞以及“卷发”(kinky hair)为特征。早期肠外补铜治疗可显著影响临床结局,但该病预后不良,常于儿童期死亡[34]。OHS 以结缔组织病为特征,常合并神经功能损害,往往在成年早期死亡。SMAX3 常由 ATP7A 的单核苷酸变异引起,主要表现为远端运动神经病[34]。
犬的铜代谢障碍(COPPER METABOLISM DISORDERS IN DOGS)
疾病病因(Disease Etiology)
品种易感性(Breed predispositions)
铜相关性肝炎的品种易感性已在多个犬种中被描述。各犬种的疾病特征简要概述见表 1。
贝灵顿㹴(Bedlington terrier)。 遗传性铜相关性慢性肝炎最早在贝灵顿㹴中被报道。该病呈常染色体隐性遗传模式[42,43]。患病犬因大量小叶中央区铜蓄积而发展为肝炎,并可进展为肝硬化。肝铜浓度可达 10,000 mg/kg 肝脏干重(dry weight liver, dwl)[43]。其致病突变为 COMMD1 基因第 2 号外显子的大片段缺失,导致纯合子犬肝脏中检测不到 COMMD1 蛋白[44]。该缺失损害胆道铜排泄,并导致尿铜排泄代偿性增加[44–46]。COMMD1 缺失尚未在任何其他犬种中被发现。
COMMD1 突变的发现使选择性繁育计划得以实施,从而防止纯合突变贝灵顿㹴的出生,使这一类型的铜相关性肝炎目前极为罕见。尽管如此,该犬种中仍会出现肝铜蓄积的病例,但肝铜水平通常较低[47,73]。金属转运基因 ABCA12 的变异最初被认为与肝铜蓄积相关[73]。然而,该发现在另一组贝灵顿㹴及拉布拉多寻回犬队列中未能重复[59,52]。此前在拉布拉多寻回犬中被认为与肝铜蓄积相关的 ATP7B:c.4358G>A 突变,在不携带 COMMD1 缺失的铜相关性肝炎贝灵顿㹴中也被发现具有较高频率。该突变可能参与该犬种的肝铜蓄积[47]。
拉布拉多寻回犬(Labrador retriever)。 拉布拉多寻回犬是第二个对其铜相关性肝炎遗传背景进行研究的犬种。与贝灵顿㹴中观察到的明确常染色体隐性遗传不同,拉布拉多寻回犬的该病具有受环境因素影响的复杂遗传基础。雌性拉布拉多寻回犬更易患铜相关性肝炎,且肝铜水平受膳食铜和锌摄入的影响[48–51,58,74–76]。
表 1 易患铜相关性肝炎的犬种概述
| 品种 | 遗传方式 | 有害突变 | 保护性突变 | 发病年龄 | 性别易感性 | 膳食影响 | 肝铜水平(正常值的倍数) | 文献 |
|---|---|---|---|---|---|---|---|---|
| 贝灵顿㹴 1 | 常染色体隐性 | COMMD1 第 2 号外显子缺失 | 未知 | 青春期至中年 | 无 | 轻微 | 50 倍 | 42–46 |
| 贝灵顿㹴 2 | 复杂 | ATP7B: c.4358G>A | 未知 | 青春期至中年 | 未知 | 未知 | 20 倍 | 47 |
| 拉布拉多寻回犬 | 复杂 | ATP7B: c.4358G>A | ATP7A:c.980C>T;RETN:c.19C>T ᵃ | 青春期至中年 | 雌性 | 显著 | 10 倍 | 48–52 |
| 杜宾犬 | 复杂 | ATP7B: c.4358G>A | 未知 | 青春期至中年 | 雌性 | 未知 | 10 倍 | 53–57 |
| 骑士查理王小猎犬 | 复杂 | ATP7B: c.4358G>A | 未知 | 青春期至中年 | 未知 | 未知 | 10 倍 | 58,59 |
| 西高地白㹴 | 未知 | 未知 | 未知 | 中年至老年 | 无 | 未知 | 20 倍 | 60–63 |
| 斯凯㹴 | 未知 | 未知 | 未知 | 中年至老年 | 无 | 未知 | 10 倍 | 64,65 |
| 威尔士柯基犬(彭布罗克与卡迪根) | 未知 | 未知 | 未知 | 青春期至中年 | 无 | 未知 | 未知 | 58,66–68 |
| 大麦町犬 | 未知 | 未知 | 未知 | 青春期至中年 | 无 | 未知 | 20 倍 | 58,69–72 |
| 大丹犬 | 未知 | 未知 | 未知 | 青春期至中年 | 无 | 未知 | 未知 | 58 |
ᵃ 虽然已发现该突变与肝铜水平存在关联,但尚未开展功能性研究以验证该突变的作用。
Ullal 及其同事对涵盖广泛犬种的 4559 例肝铜蓄积病例进行了大型研究,最近在该研究中确认了拉布拉多寻回犬对铜相关性肝炎的品种易感性[58]。与贝灵顿㹴相反,对拉布拉多寻回犬 COMMD1 基因的测序并未发现与肝铜水平相关的突变[52]。
此后又发现了若干影响拉布拉多寻回犬肝铜水平的其他遗传因素。ATP7B:c.4358G>A 突变以加性方式与肝铜水平升高相关。功能性研究显示,该突变可能通过 ATP7B 蛋白在细胞内的错误定位而减少胆道铜排泄。在高铜环境下,该蛋白滞留于内质网,而正常情况下它应重新定位于毛细胆管面[48]。此外,位于 X 染色体上的 ATP7A:c.980C>T 突变与肝铜水平降低相关。功能性研究显示,携带该突变的细胞铜外排速率降低[48],这可能导致肠道铜吸收减少。ATP7A 和 ATP7B 的这两个突变均位于至少 7 种不同哺乳动物物种中保守的氨基酸位点。二者合计可解释肝铜水平估计遗传变异度(48%)中约 12.5% 的变异。由于 ATP7A 突变等位基因频率低,加之重复研究的样本量有限,该突变尚未在其他地理区域的队列中得到验证。ATP7B 突变与肝铜水平之间的关联已在其他拉布拉多寻回犬队列[74,75]、贝灵顿㹴[47]、骑士查理王小猎犬[59] 和杜宾犬[53] 中得到证实。
一项研究在拉布拉多寻回犬病例对照队列中检测了 74 个可能参与铜代谢与稳态的基因。其中一个突变 RETN:c.19C>T 与较低的肝铜浓度相关。然而,迄今为止尚未开展功能性研究,该关联背后的细胞机制仍不清楚。该突变在研究中的等位基因频率较低(0.08),对该犬种肝铜蓄积总体发生率的影响甚微[77]。
杜宾犬(Dobermann)。 杜宾犬易患伴有肝铜水平升高的慢性肝炎[54]。已报道的患病率不一:一项研究报告亚临床肝炎的患病率为 3.4%[55],另一项为 21%[54];但这 2 项研究确定患病率的方法不同。在该犬种内,雌性易感性明显[54]。杜宾犬中观察到的慢性肝炎具有一些独特的品种特征,典型表现为门管区以淋巴细胞-浆细胞浸润为主及碎片状坏死。有证据表明该病为自身免疫性疾病与(伴或不伴)肝铜蓄积的混合病因。支持自身免疫成分的证据包括抗组蛋白抗体[78]、肝细胞上 MHCII 异常表达[79],以及针对甘油醛-3-磷酸酶和乙醇脱氢酶的自身抗原[80]。这种混合病因使杜宾犬的疾病进展比其他犬种更严重,预后更差[81–83]。在拉布拉多寻回犬中发现的 ATP7B 和 ATP7A 突变已在美国和荷兰杜宾犬队列中进行了评估。ATP7B 突变在两个地理群体中均被发现与肝铜水平相关。APT7A 的次要等位基因频率过低,无法评估肝铜与突变状态之间的关系[53]。对杜宾犬 COMMD1 基因外显子及侧翼内含子区域的评估未发现与肝铜水平相关的变异[52]。总体而言,杜宾犬的铜相关性肝炎表现出明显的雌性易感性,似乎同时涉及自身免疫机制和铜蓄积,其中后者与 ATP7B:c.4358G>A 突变相关。
骑士查理王小猎犬(Cavalier King Charles spaniel)。 来自世界各地(包括荷兰[84]、日本[66]、法国[85] 和澳大利亚[86])的多项回顾性组织病理学研究已描述了骑士查理王小猎犬的铜相关性慢性肝炎病例。一项针对美国 4559 份肝活检组织的大型组织病理学研究显示,骑士查理王小猎犬与其他若干犬种一样,更易出现肝铜水平升高[58]。此外,一项近期针对骑士查理王小猎犬的研究发现,所有病例对于 ATP7B:c.4358G>A 突变均为杂合子(n = 4)或纯合突变(n = 7)[59]。该犬种中尚未见杜宾犬和拉布拉多寻回犬那样的雌性易感性报道。
西高地白㹴(West Highland White terrier)。 西高地白㹴(West Highland White Terrier, WHWT)中描述了遗传模式不明的铜相关性慢性肝炎[63]。在一项纳入 395 只 WHWT 的研究中,发现肝铜水平呈连续分布,没有明确的病例-对照界限。最常报告的肝铜水平为 100 至 800 ppm dwl,最高报告值超过 3000 ppm dwl。6 月龄以下犬的肝铜水平低于年龄更大的犬[62]。WHWT 对铜相关性肝炎的易感性最近在一项来自美国的大型病理数据库研究中得到确认[58]。此外,世界各地偶有 WHWT 铜相关性肝炎病例的报道[67,84,85,87]。迄今尚未在 WHWT 中描述影响肝铜水平的突变。
其他易感犬种(Other predisposed breeds)。 大麦町犬[58,69–72]、威尔士柯基犬(彭布罗克与卡迪根)[58,66–68]、大丹犬[58] 和斯凯㹴[64,65] 中已描述了铜相关性肝炎的品种易感性。迄今为止,尚未在这些犬种中开展遗传学研究。
一般犬群及其他犬种(General dog population and other breeds)。 其他犬种中也有铜相关性肝炎病例的报道,包括拳师犬[88]、安纳托利亚牧羊犬[89] 和西伯利亚哈士奇[90]。组织病理学数据库的回顾性研究描述了多种犬种的铜相关性肝炎病例,包括荷兰毛狮犬[62]、美国可卡犬与英国可卡犬(研究中并非总能明确品种变异)[62,84–86,91]、贵宾犬[92,93]、边境牧羊犬[92]、爱尔兰猎狼犬[92]、金毛寻回犬[67,84,92]、万能㹴[84,86]、凯恩㹴[84]、杰克罗素㹴[85,91]、德国牧羊犬[67,85,93]、英国史宾格犬[67]、美国斯塔福郡㹴[85]、博斯犬[85]、喜乐蒂牧羊犬[67]、西施犬[67]、哈瓦那犬[67]、比熊犬[67]、克伦伯猎鹬犬[68] 和苏格兰㹴[86],以及杂交犬。
总之,铜相关性肝炎可在广泛犬种中以未知的频率出现。因此,无论犬种如何,均推荐将罗丹宁(rhodanine)或红氨酸(rubeanic acid)染色和/或铜定量评估作为肝活检评估的常规流程,这与美国兽医内科学院(American College of Veterinary Internal Medicine, ACVIM)关于犬慢性肝炎诊断与治疗的共识声明一致[94]。
膳食铜与锌(Dietary copper and zinc)
科学文献中曾就铜相关性肝炎的病因究竟是遗传性还是铜暴露性存在争议。这一争议并不涉及贝灵顿㹴的 COMMD1 铜相关性肝炎——该病以几乎所有纯合突变犬均出现极高肝铜水平为特征,与铜暴露无关。但在讨论其他罹患铜相关性肝炎的犬种时,这一问题被提出。1996 年,美国饲料管理官方协会(Association of American Feed Control Officials, AAFCO)建议将犬粮中的氧化铜替换为生物利用度高得多的硫酸铜和铜螯合物。这提高了犬粮中具有生物活性的铜含量[95,96]。食物组成的这一变化导致犬的肝铜水平升高。该效应最早在 72 只拉布拉多寻回犬中被报道:1996 年之后其肝铜水平更高,且无论犬只有无肝炎组织学征象,肝铜水平均升高[96]。这些发现在一项更大规模的研究中得到印证,该研究比较了 1982—1988 年与 2009—2015 年两个时间段内易感犬种(定义为拉布拉多寻回犬、WHWT、杜宾犬和大麦町犬)与非易感犬种的肝铜水平。2009—2015 年期间的肝铜水平更高。肝铜水平大于 1000 mg/kg dwl 的犬只比例在易感犬种组中上升,而在非易感犬种组中未上升。此外,1996 年之后与肝铜水平相关的原发性肝炎病例比例也更高。研究以拉布拉多寻回犬作为哨兵动物,检测了 1982—2015 年的样本。该组犬的肝铜水平在 1996 年 AAFCO 建议发布前后急剧上升,但在 2000 年代趋于稳定[95]。这些发现印证了遗传易感性与膳食铜暴露的结合是铜相关性肝炎的常见病因。在拉布拉多寻回犬中开展的膳食研究支持这一观点[49,96,97]。最可能的情况是,出现铜相关性肝炎的犬具有遗传易感性,伴或不伴膳食因素的参与。
除膳食铜外,膳食锌也可影响肝铜水平。在拉布拉多寻回犬中,肝铜水平与膳食铜水平呈正相关,与膳食锌水平呈负相关[49],即使该研究中的锌水平显著低于用于降低肝铜水平时所给予的锌剂量。膳食锌与膳食铜水平同肝铜浓度之间的相互作用仍需进一步研究。
Fanconi 综合征(Fanconi syndrome)
Fanconi 综合征以近端小管对碳酸氢盐、葡萄糖、氨基酸、水及其他电解质的重吸收受损为特征。在若干铜相关性肝炎患犬中描述了获得性、一过性 Fanconi 综合征,包括 1 只克伦伯猎鹬犬、2 只 WHWT 和 9 只拉布拉多寻回犬。这些病例的表现与人类 Wilson 病和 MD 中可能出现的 Fanconi 综合征相似[68,98,99]。肾脏近端小管上皮的铜蓄积导致近端小管功能障碍。尿液分析显示尿比重降低、蛋白尿和血糖正常的糖尿。D-青霉胺螯合治疗可逆转这些异常。作者建议对所有诊断为铜相关性肝炎的犬进行尿液分析。此外,对于 Fanconi 综合征患犬,应将铜相关性肝炎列为可能的鉴别诊断之一。
猫的 ATPase COPPER TRANSPORTING BETA 相关铜代谢障碍(ATPase COPPER TRANSPORTING BETA-RELATED COPPER METABOLISM DISORDERS IN CATS)
猫的原发性肝铜蓄积偶有报道[100–102]。研究者对若干原发性肝铜蓄积病例的猫进行了 ATP7B 和 COMMD1 基因编码区测序。未在 COMMD1 编码区发现变异。在 ATP7B 中鉴定出若干单核苷酸变异,其中一些位于多个哺乳动物物种中保守的核苷酸位点。每种可能有害的突变仅描述了 1 或 2 个病例,且尚未开展蛋白功能方面的功能性研究。然而,这些发现提示 ATP7B 突变可能在猫原发性肝铜蓄积的病因中发挥作用[103–105]。
诊断(DIAGNOSIS)
信号特征(Signalment)
肝铜蓄积及临床症状的出现受遗传易感性与环境铜暴露的共同影响。潜在的遗传因素很重要,例如携带 COMMD1 缺失的犬通常比携带上述 ATP7B 突变的犬发病年龄更小。总体而言,铜相关性肝炎的临床症状出现的中位年龄为 6 岁,报道范围为 7 月龄至 12 岁[54,58,59,68,72,85,86,106]。一项对 4559 份肝活检的回顾性分析证实了早期研究报告的品种易感性,同时还发现寻血猎犬与较低的肝铜水平相关[58]。拉布拉多寻回犬[51,76] 和杜宾犬[54,81] 中已注意到雌性易感性。目前尚无流行病学调查评估地理位置或其他环境因素如何影响发病。
临床表现(Clinical Signs)
铜可在较长时期内蓄积,在疾病终末期之前可能并不出现明显临床症状。患病犬可在数年间于肝脏中蓄积铜,之后才出现炎症的组织学改变。组织学炎症会逐渐进展,最终累及足够多的肝脏组织,超出肝脏巨大的储备能力。铜相关性肝炎的早期临床症状与许多其他肝内和肝外疾病重叠,包括厌食或食欲减退(原文作 anorexia or hyperoxia)、嗜睡、呕吐、腹泻、体重下降和肌肉萎缩。随着疾病进展,犬可能出现肝硬化、门静脉高压和肝功能障碍的临床症状,包括黄疸、腹水、多尿/多饮、黑便,以及与肝性脑病相符的神经系统改变。慢性铜中毒继发急性溶血危象在绵羊中很常见,但在犬中罕见。有一例贝灵顿㹴因铜储存障碍发生急性溶血危象的病例报告[107]。
基因检测(Genetic Testing)
COMMD1 缺失、ATP7B:c.4358G>A、ATP7A:c.980C>T 和 RETN:c.19C>T 的基因检测已有商业化产品。由于 RETN:c.19C>T 尚未经过功能验证,作者不建议检测该突变。其他 DNA 检测可用于以下几种情形:可根据基因型评估个体发生肝铜蓄积的风险;为知情繁育决策提供支持,以降低群体中高风险基因型的流行率;并通过指导治疗和长期管理策略,为临床决策提供依据。
随着犬类直接面向消费者的检测兴起,犬主无需兽医介入即可订购 RETN:c.19C>T、ATP7B:c.4358G>A、ATP7A:c.980C>T、COMMD1 缺失的 DNA 检测。这些检测或以单项检测形式提供,或作为检测多种据报道与犬疾病相关突变的套餐的一部分提供。各实验室自行确定其质量标准。尽管已有相关倡议正在推进,但目前对于开展一项检测所需证据体量、检测结果的可靠性,以及检测结果必须同时提供的遗传咨询信息,尚无统一标准。作者曾见到针对 ATP7B:c.4358G>A 和 ATP7A:c.980C>T 突变检测结果解读的错误信息,其中犬有时被诊断为 Wilson 病或 MD,并给出适用于人类病例的预后与治疗建议,从而歪曲了这些突变在犬中的含义。由于这两种突变广泛存在于多种犬种中(未发表数据),兽医应当意识到,可能会遇到因意外 DNA 结果而感到担忧的犬主前来咨询。作者建议,对于 DNA 检测解读的一般性问题,应向兽医临床遗传学专家寻求意见。
临床病理学(Clinical Pathology)
在肝铜蓄积的亚临床阶段,生化指标可能并无异常。随着铜持续蓄积并造成肝细胞损伤,最常见的预期生化改变是丙氨酸氨基转移酶(alanine aminotransferase, ALT)和碱性磷酸酶(alkaline phosphatase, ALP)升高,且预期 ALT 升高的幅度超过 ALP。一项研究对 5 只新生 COMMD1 缺陷犬进行了为期 42 个月的连续肝组织病理学和生化指标随访。该研究显示出一个明确的顺序:自 6 月龄开始铜蓄积,至 18 月龄出现肝炎,而在此期间犬只临床表现正常。血清 ALT 和 ALP 分别于 24 月龄和 18 月龄出现升高,而血清胆汁酸(bile acids, BA)和白蛋白在整个研究期间均维持在参考范围内[108]。此前一项研究评估了 ALT、ALP 和 BA 在 191 只临床健康的拉布拉多寻回犬中检出肝炎的敏感性和特异性。该研究中,122/191(64%)临床健康的拉布拉多寻回犬在肝脏组织学上可见炎性浸润。在该群体中,ALT、ALP 和 BA 检出急性肝炎(定义为无纤维化的炎性浸润,伴或不伴临床症状)的敏感性分别为 45%、15% 和 15%;对于慢性肝炎(伴或不伴临床症状),敏感性分别为 71%、35% 和 13%[109]。这些研究凸显了兽医若依赖 ALT、ALP 和 BA 测定所面临的挑战——这些指标均不足以灵敏地检出患病犬的亚临床铜蓄积。
解读 ALT 水平可能具有挑战性,原因是健康犬之间存在个体差异,而这与 13 号染色体上的一个遗传位点相关。尽管确切的致病突变尚未明确,但推测 GPT 基因——或控制 ALT 表达的调控区——的变异会影响基线 ALT 活性。与该性状相关 SNP 的非参考等位基因为杂合或纯合的犬往往 ALT 水平较低,因而更可能被漏诊[110,111]。对个体犬只进行 ALT 的动态追踪,可能有助于建立个体化基线值,从而实现更准确的监测。
在疾病晚期,常可检出 ALT 和 ALP 升高,并可伴有提示肝功能障碍的其他生化异常,包括白蛋白、血尿素氮(blood urea nitrogen, BUN)、胆固醇和葡萄糖降低,以及氨、胆红素和 BA 升高。凝血检测异常包括凝血酶原时间(prothrombin time, PT)和活化部分凝血活酶时间(activated partial thromboplastin time, aPTT)延长,以及纤维蛋白原降低。晚期肝病患犬在黏弹性检测(即血栓弹力图 [thromboelastography, TEG] 或黏弹性凝血监测仪 [viscoelastic coagulation monitor, VCM])中可能呈现多种异常模式,可提示高凝、低凝或高纤溶状态[112,113]。因此,在进行肝活检前实施凝血功能检查是审慎的做法。这些发现均非铜相关性肝炎所特有,在其他肝脏疾病中也可观察到,包括慢性免疫介导性肝炎、肉芽肿性肝炎,以及肿瘤性和感染性肝病。
影像学(Imaging)
在晚期疾病患犬中,腹部 X 线片可能显示肝脏缩小(microhepatica)的征象,或与腹水相符的浆膜细节减少[94]。腹部超声对大多数兽医而言易于获得,可用于评估肝实质与肝脏大小,并检出那些临床症状可能与铜相关性肝炎重叠、或可能影响诊断与治疗计划的其他器官异常。肝脏的超声改变可因疾病慢性程度不同以及肝叶不同而异[94]。在疾病早期,犬的肝脏外观可能正常或仅有轻微改变[114]。随着疾病进展,肝脏可因纤维化的存在而回声增强。在疾病后期,肝脏可缩小,边缘不规则。肝回声结构可变得不均匀,并出现低回声结节。在终末期疾病中,可出现门静脉高压的征象,包括门静脉血流速度降低或离肝血流、腹水,以及多条获得性门体侧支循环。还可能出现导致门静脉高压或由门静脉高压所致的门静脉血栓[85,94,115–117]。最后,腹部超声有助于引导细针穿刺进行细胞学检查、规划经腹腔镜或开腹的肝活检,以及实施经皮超声引导的 Tru-cut 针肝活检[118]。
细胞学(Cytology)
可对肝脏实施细针穿刺以进行细胞学评估,判断是否存在过量铜,但该方法存在一些局限性。铜的首选染色方法为红氨酸染色(铜颗粒呈蓝绿至绿黑色)或罗丹宁染色(铜颗粒呈橙色至红色)。已有针对肝脏细胞学穿刺标本进行罗丹宁或红氨酸染色的操作方案,并提出了一种半定量分级系统[119–121]。当肝活检不可行时,细胞学评估可作为检出肝细胞内铜的创伤更小的替代方法。然而,该方法存在若干局限性。由于肝叶间差异、在再生性肝结节中取样,或在已有晚期肝脏改变的患犬中取样,铜水平可能被低估。细胞学无法评估铜的分区分布,无法检出纤维化,也无法对肝铜进行定量。此外,在诊断犬肝炎时,细胞学与组织病理学结果之间的相关性较差[122,123]。这些局限性可能对患病犬的治疗决策产生重大影响。
组织病理学(Histopathology)
肝活检与组织病理学发现(Hepatic biopsy and histopathologic findings)
用于组织病理学分析和肝铜定量的肝脏组织活检是诊断犬铜相关性肝炎的金标准。取样可通过超声引导经皮穿刺活检、腹腔镜或开腹手术进行[118]。根据 ACVIM 关于犬慢性肝炎诊断与治疗的共识声明,应至少从 2 个不同肝叶获取至少 5 份活检样本[94]。用于肝铜定量的标本应从肝脏肉眼病变最轻的区域获取,并注意避开再生性结节,因为从再生结节取样可能导致肝铜被低估[124–126]。在早期原发性铜相关性肝炎中,铜主要蓄积于肝小叶的小叶中央区肝细胞内。铜的进行性蓄积导致肝细胞坏死和炎症,并出现载铜巨噬细胞。这进而引起炎性浸润,浸润细胞可为单核细胞,或由淋巴细胞、浆细胞和中性粒细胞混合组成。由此产生的慢性肝炎导致纤维化、肝硬化及再生性结节形成,而所有这些都可能低估疾病的严重程度[127]。组织病理学分析最好由专注于肝脏的病理学家完成,并应包含一组特殊染色,以突出纤维组织和网织纤维,以及通过罗丹宁染色(图 2)或红氨酸染色显示铜蓄积[94](有关更多信息,请参见本期 Joao P. Cavasin 的文章《肝脏组织病理学:临床医师应了解什么》)。
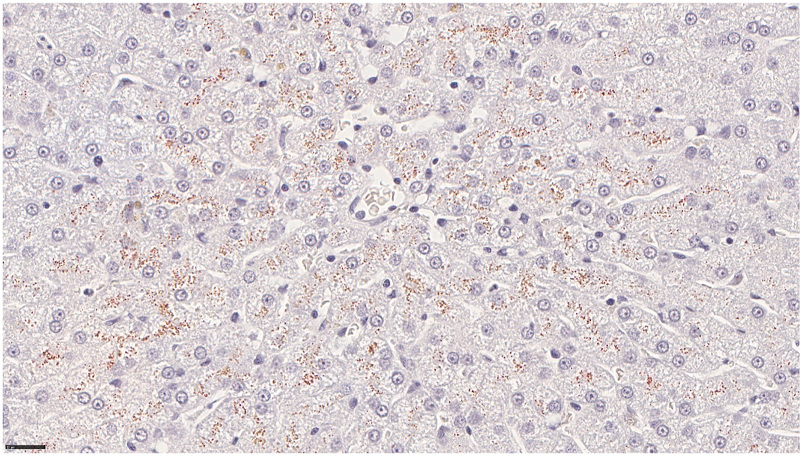
图 2. 肝脏,罗丹宁铜染色:小叶中央区肝细胞内充满大量胞质内红染的铜颗粒。标尺 = 50 μm。(图片由德克萨斯 A&M 大学 Joao Cavasin 博士提供。)
铜定量(Copper Quantification)
定性铜测定(Qualitative copper determination)
可通过罗丹宁或红氨酸染色对肝组织切片进行病理性铜的定性评估,以检出铜颗粒的存在及其腺泡分布,以及蓄积的严重程度。改变最常在小叶中央区较为严重,但随着铜持续蓄积,可扩展至中间带和门管区周围区域[94]。半定量评分系统与定量测定之间具有合理的相关性,采用 0 至 5 分的分级标准,其中铜评分大于 2 视为异常[42,96,128,129]。该评分的详细内容见表 2。铜蓄积可伴有铜肉芽肿或坏死肝细胞[94]。当可获得 1 个以上肝叶用于分析时,病理学家可能能够识别肝叶之间的差异,考虑纤维化或再生性结节等改变,并对铜相关性肝炎的疑似程度给出总体评估。
表 2 肝铜蓄积的半定量组织学评分
| 评分 | 组织学描述 |
|---|---|
| 0 | 未检出铜 |
| 1+ | 小叶中央区散在的肝细胞含少量铜阳性颗粒 |
| 2+ | 小叶中央区成小群的肝细胞含少量至中等量铜阳性颗粒 |
| 3+ | 小叶中央区肝细胞及部分巨噬细胞含中等量铜阳性颗粒 |
| 4+ | 小叶中央区及中间带肝细胞和巨噬细胞含大量至中等量铜阳性颗粒 |
| 5+ | 全小叶或弥漫分布的肝细胞和巨噬细胞含大量至中等量铜阳性颗粒 |
评分 0、1+ 和 2+ 见于肝铜水平处于参考范围内的犬,而 3+、4+ 和 5+ 与病理性肝铜蓄积及铜相关性肝炎相关。
改编自 Van Den Ingh T, Van Winkle T, Cullen J, Charles J, Desmet V. Morphologic classification of parenchymal disorders of the canine and feline liver, 2. hepatocellular death, hepatitis and cirrhosis. In: WSAVA Liver Standardization Group, ed. WSAVA Standards for Clinical and Histopathological Diagnosis For Canine and Liver Diseases. Saunders-Elsevier; 2006:85-102.
定量铜测定(Quantitative copper determination)
定量评估肝铜浓度的金标准是原子吸收光谱法,该方法需要至少 50 mg 湿重(约 10 mg 干重)组织[130]。检测结果以干重(dwl)为基础报告。其他肝铜浓度测定方法包括电感耦合等离子体原子发射光谱法和中子活化分析[131,132]。犬的正常肝铜浓度为 120 mg/kg dwl 至 400 mg/kg dwl。测定值高于 600 mg/kg dwl 视为病理性,患病犬的测定值可超过 4000 mg/kg dwl。需要注意的是,测定值低于 80 mg/kg dwl 提示铜缺乏,若患病动物在非必要情况下被过度长期螯合治疗即可能出现这种情况。如果在活检时未留取肝组织用于铜定量,或定量与定性评估结果不一致,可从蜡块中获取脱蜡组织送检原子吸收光谱法[125]。
数字化铜定量(Digital copper quantification)
已对在罗丹宁染色的组织学切片上使用专有阳性像素算法的数字图像分析进行了评估。数字化定量与肝铜定量浓度高度相关,甚至比定性评分更准确。该方法可评估铜的分区分布,并有助于在晚期疾病中小叶结构已被破坏时校正铜蓄积的差异[126]。
生物标志物(Biomarkers)
目前,诊断和监测犬铜相关性肝炎的唯一途径是肝组织病理学检查和铜定量,而犬主可能因顾虑操作的有创性或费用而不常选择该方法。与肝铜浓度相关、且可在患病犬血液或尿液中测定的无创生物标志物,对于早期诊断和治疗监测将极具价值。已研究了若干方法,成效不一。血液铜的测定与肝铜水平不相关。在人类 WD 患者中,CP 水平降低有助于诊断;然而,该方法目前似乎尚不能辅助犬铜相关性肝炎的诊断(Aicher,未发表数据,2025)。在诊断为铜相关性肝炎的拉布拉多寻回犬群体中研究了氧化应激的外周生物标志物。与健康对照相比,血浆反应性代谢物与抗氧化潜力的比值升高,且血浆反应性代谢物浓度与肝铜浓度高度相关。血浆和尿液中异前列腺素(isoprostanes)——反应性代谢物相关脂质过氧化的化学稳定终产物——的测定结果变异较大,且在不同群体之间无显著差异[133]。另一种同样在拉布拉多寻回犬中开展的方法评估了红细胞 CCS 与红细胞 SOD1 蛋白浓度之间的关系。在肝铜水平升高的拉布拉多寻回犬中,红细胞 CCS 及 CCS/SOD1 比值均降低[134]。此外还在比格犬、拉布拉多寻回犬和 Beagleton 犬中研究了给予与不给予 D-青霉胺(D-penicillamine, DPA)情况下的尿铜排泄。该研究发现,在给予 DPA 后 24 h 内,肝铜水平与尿铜排泄及铜/肌酐比值之间没有明确关联。基线尿铜/锌比值与肝铜水平相关,但肝铜水平处于参考范围内与高于参考范围的拉布拉多寻回犬之间存在重叠,限制了其诊断价值[135]。最近一项初步研究检测了肝铜浓度正常与升高的拉布拉多寻回犬的血清 microRNA,结果显示 cfa-miR30b 可能作为候选生物标志物[136]。这些研究凸显出,需要在更大规模的犬群中、在铜蓄积的不同阶段,以及在治疗干预之后,对这些生物标志物进行进一步评估。
治疗(TREATMENT)
一般建议(General Recommendations)
一般而言,铜相关性肝炎的治疗包括终身限制膳食铜、清除肝脏中过量的铜、抗氧化治疗,以及(在适当情况下)控制炎症。治疗方面的考量概述见表 3。
膳食管理(Dietary Management)
所有诊断为铜相关性肝炎的犬均推荐终身限制膳食铜。主治兽医必须从犬主处获得完整而准确的饮食史,以确定所有可能的膳食铜来源。若未能考虑到主粮之外的零食和补充剂的铜含量,可能导致治疗失败。推荐使用铜含量低于 0.12 mg/100 kcal 的限制铜膳食[94,97,137,138]。如果犬不愿食用市售的限制铜膳食,或存在其他合并症,建议由临床兽医营养师配制自制膳食。市售的限制铜膳食往往同时也限制蛋白质,而这对大多数铜相关性肝炎患犬并无必要。因此,可能需要在膳食中额外添加蛋白质(有关更多信息,请参见本期 Jonathan Stockman 的文章《犬猫肝胆疾病的营养管理》)。饮用水的铜浓度应低于 0.1 μg/g;对于主要通过铜质管道或井水获取饮用水的犬,这是一项重要的考量[94]。兽医还可能需要考虑犬所处环境中可能存在的其他铜暴露来源,包括农业活动或施用铜剂的池塘。在此前一项研究中,约 50% 的拉布拉多寻回犬在饲喂低铜/高锌膳食后肝铜可降低 50%[138]。
表 3 犬铜相关性肝炎的内科治疗(改编自 ACVIM 关于犬慢性肝炎诊断与治疗的共识声明[94])
| 治疗 | 作用机制/获益 | 剂量/疗程 | 不良反应 | 备注 |
|---|---|---|---|---|
| 限制膳食铜(水、主粮、零食及补充剂) | 减少肠道对膳食、零食及补充剂中铜的吸收;当饮用水铜浓度超过 0.1 μg/g 时,减少来自饮用水的铜摄入 | 膳食铜含量终身不应超过 0.09–0.12 mg/100 kcal;使用前将铜质管道中的水放流 5 分钟;瓶装水应为蒸馏水 | 使用市售肝脏处方粮会导致大多数犬出现非预期的蛋白质限制;当存在并发(获得性)门体分流时,蛋白质限制是有指征的;建议补充 0.5–1.5 g 蛋白质/kg 体重 | 若犬主不愿饲喂市售膳食,或存在多种合并症必须加以考虑,由临床兽医营养师配制的自制膳食可能有所帮助;应告知犬主仅饲喂低铜零食或补充剂;犬主和兽医可能需要联系生产商以获取膳食和零食的铜含量 |
| D-青霉胺 | 其巯基与铜结合,随后经尿液排出;诱导金属硫蛋白生成,后者与肠上皮细胞和肝细胞内的铜结合;可能具有额外的抗炎和抗纤维化特性 | 10–15 mg/kg 口服,每 12 h 一次,空腹给药(至少在饲喂前 30 min 或饲喂后 2 h)以获得最佳吸收;可与一小块肉或抗恶心药物同服以提高耐受性 | 常见:胃肠道副作用,如恶心、呕吐或厌食;皮肤反应;肾小球肾炎及由此导致的蛋白尿。罕见:免疫学反应;骨髓病变;致畸性;铜、锌或吡哆醇缺乏;诱导 ALP 活性及糖原性空泡性肝病 | 监测生化指标组合、血常规(complete blood count, CBC)、尿液分析及尿蛋白/肌酐比(urine protein-to-creatinine ratio, UPC),以观察不良反应并确定螯合治疗的疗程;疗程确定可依据基因检测结果、重复肝活检及肝铜定量,或 ALT 监测。市售 D-青霉胺制剂可能费用过高;复合配制制剂似乎有效;禁止与锌联合治疗 |
| 曲恩汀(Trientene) | 螯合肝铜 | 5–7.5 mg/kg 口服,每 12 h 一次 | 急性肾损伤 | 费用过高,在犬中的使用经验很少 |
| 锌 | 干扰肠道对膳食铜的吸收;诱导肠上皮细胞和肝细胞中金属硫蛋白的表达 | 5–10 mg/kg/日,或每日总量 200 mg 元素锌,口服,分次给予;氧化锌吸收差,因此可使用葡萄糖酸锌、醋酸锌或硫酸锌;葡萄糖酸盐和醋酸盐制剂可能比硫酸盐耐受性更好 | 胃肠道副作用,包括恶心和呕吐;当血浆锌浓度达到毒性水平(>800–1000 μg/dL)时可发生溶血性贫血 | 降低肝铜浓度的速度非常缓慢,因此更适合用于维持治疗;禁止与 DPA 联合治疗;应测定血浆锌浓度以达到有效剂量,理想的血浆锌浓度为 200–300 μg/dL 以获得治疗效果;必须妥善保存 |
| S-腺苷甲硫氨酸(S-adenosylmethionine, SAMe) | 增加细胞内半胱氨酸,从而促进肝脏谷胱甘肽合成 | 20 mg/kg 口服,每日一次,空腹给药 | 罕见恶心、呕吐或食欲下降 | 必须妥善保存 |
| 维生素 E(α-生育酚) | 防止脂质过氧化;抗纤维化;抗炎 | 10 IU/kg 口服,每日一次,每只犬不超过 400 IU;随食物给予以提高生物利用度 | 过量可损害维生素 K 活性,并因生育酚自由基蓄积而可能增加氧化损伤风险 | 可使用非处方制剂 |
| 泼尼松/泼尼松龙 | 抗炎;在严重患病犬开始螯合治疗和限制铜膳食时,可能促进其食欲 | 0.5–1.0 mg/kg 口服,每日一次 | 诱导肝酶;多尿/多饮;多食;高凝状态;剃毛区域皮肤变薄及毛发不再生长;诱导肝酶及类固醇性肝病,可能干扰螯合治疗的监测与疗程判断 | 每日不超过 40 mg;不可骤然停药 |
| 环孢素 | 钙调神经磷酸酶抑制剂;免疫调节,抑制 T 淋巴细胞的活化和增殖 | 5 mg/kg 口服,每 12–24 h 一次;最好在饲喂前或饲喂后 2 h 给予,以提高生物利用度 | 胃肠道症状常见;牙龈增生、乳头状瘤病、机会性感染、多毛;极罕见肝毒性或肾毒性 | 必须使用美国药典(USP)改良制剂;经细胞色素 P-450 3A 酶系统代谢,与其他药物合用时须谨慎;对携带 MDR1 突变的犬给药前应咨询兽医药理学家 |
引自 Webster CRL, Center SA, Cullen JM, et al. ACVIM consensus statement on the diagnosis and treatment of chronic hepatitis in dogs. J Vet Intern Med 2019;33(3):1173. https://doi.org/10.1111/jvim.15467
螯合治疗(Chelation)
DPA 是青霉素的一种高溶解度降解产物,是人类 WD 患者以及 COMMD1 突变纯合贝灵顿㹴终身铜螯合治疗的首选药物。DPA 通过其巯基与铜结合,随后经尿液排出[135,139,140]。DPA 还具有其他有益作用,包括多项研究显示其可提高肝细胞和肠上皮细胞中 MT 的水平[141]。然而,有证据表明当 ATP7B 蛋白功能受损时,这一效应会减弱[142,143]。与肝细胞内 MT 结合的铜有助于减轻游离铜造成的氧化损伤。与肠上皮细胞内结合的铜则有助于随肠上皮细胞脱落入粪便而排出膳食铜。DPA 还具有轻度的抗炎和抗纤维化特性[94,144]。
DPA 的推荐剂量为 10 至 15 mg/kg,每 12 h 一次,空腹给药,因为食物会显著降低其生物利用度[145]。胃肠道副作用是接受 DPA 的犬最常见的不良反应,可通过与一小块肉同服或使用抗恶心治疗来减轻。DPA 的其他副作用罕见,但可能包括蛋白尿、皮肤反应、骨髓病变和免疫学反应。副作用预期在停用 DPA 后消退。疗程最好通过康复期肝活检及铜定量来确定;然而,犬主仅在少数情况下同意进行该项检查。因此,常以肝酶(尤其是 ALT)恢复正常作为肝活检的替代指标,用以判断治疗是否成功以及螯合治疗的疗程。然而,当患犬表现为亚临床肝铜蓄积且 ALT 水平处于参考范围内时,该方法无法使用。ACVIM 共识声明推荐在 ALT 活性恢复正常后至少继续螯合治疗 1 个月。此外,美国的共识专家组成员报告,他们常规使用专业药房复合配制的 DPA,并发现其有效[94]。需要注意的是,DPA 可能诱导 ALP 活性并引起空泡性肝病,从而干扰肝酶的解读[56]。除 COMMD1 突变纯合的贝灵顿㹴外,其他犬种很少需要终身螯合治疗。研究者对拉布拉多寻回犬螯合治疗期间肝铜下降速率进行了研究,并建立了预测模型。按照该预测模型,起始肝铜水平为 750 mg/kg dwl 的犬需要 5 个月治疗,起始肝铜水平约为 1000 mg/kg dwl 的犬需要约 8 个月治疗。然而,观察到肝铜下降速率存在个体差异[140]。所观察到的个体差异可部分由拉布拉多寻回犬的 ATP7B 突变解释:不携带该突变的拉布拉多寻回犬肝铜下降快于杂合子,而纯合突变犬所需治疗时间最长(E.R. den Boer,未发表数据)。
其他螯合剂包括四硫代钼酸铵(ammonium tetrathiomolybdate)和曲恩汀。此前一项研究通过随机交叉试验考察了健康犬静脉和口服四硫代钼酸铵的药代动力学,结果显示口服给药后吸收不稳定[146]。除 DPA 外的其他螯合剂使用经验有限,共识专家组不推荐使用[94]。
锌(Zinc)
锌可诱导 MT,后者在肠上皮细胞中与铜结合,从而限制肠道铜的吸收。锌还可能通过诱导肝细胞内 MT 来降低肝铜。给予锌降低肝铜浓度的速度非常缓慢,因此对于肝铜水平显著升高的犬,不应将其作为初始治疗的首选,而应优先选择 DPA[147]。此外,DPA 与锌不应同时给予,因为二者会相互抵消对方的作用[94]。
与 DPA 类似,锌必须空腹给予。氧化锌生物利用度有限,但可使用醋酸锌、葡萄糖酸锌和硫酸锌。硫酸盐的耐受性可能不如醋酸盐和葡萄糖酸盐制剂。血浆锌浓度必须达到至少 200 μg/dL 才能抑制犬的肠道铜吸收[148]。推荐剂量为每日两次、每次 5 至 10 mg/kg 元素锌,或每日总量 200 mg 元素锌分次给予,以使血浆锌水平达到 200 至 300 μg/dL 之间。应监测血浆锌水平,因为浓度超过 1000 μg/dL 可导致溶血[147]。
其他支持治疗(Other Supportive Therapies)
炎症严重的病例可能受益于短期使用最高 1 mg/kg/日的泼尼松或 5 mg/kg 的环孢素,以减缓炎症并防止进一步的肝损伤,因为螯合治疗可能需要数月至数年才能使肝铜水平恢复正常。可能需要对症治疗,例如使用抗恶心药物或食欲促进剂,以鼓励犬耐受螯合治疗并摄入限制铜的膳食。共识专家组成员指出,使用抗炎剂量的泼尼松可能促进食欲不振的犬进食。保肝治疗(如 S-腺苷甲硫氨酸或维生素 E)常被使用。对于疾病更为晚期并出现并发症(如门静脉高压、门静脉血栓或腹水)的犬,可能需要其他治疗(请参见本期 Jonathan Lidbury 的文章《肝病的并发症》)。
长期管理(Long-Term Management)
经成功治疗使肝铜水平降低的患病犬仍有铜再蓄积的风险。因此,长期监测与管理是必要的。作者建议,对于已在这些突变上得到验证的犬种,应检测这些突变。例如,在拉布拉多寻回犬中,ATP7A:c.980C>T 和 ATP7B:c.4358G>A 均已得到验证。然而,这两种突变广泛分布于犬群中的多个犬种,其中 ATP7B 突变比 ATP7A 突变更为常见,可能在这些犬种中具有相关性(E.R. den Boer,未发表数据)。携带 ATP7A:c.980C>T 突变的拉布拉多寻回犬蓄积肝铜的可能性较低,而携带 ATP7B:c.4358G>A 突变的拉布拉多寻回犬则更可能发生肝铜再蓄积,对于 ATP7B 突变纯合的拉布拉多寻回犬尤其如此。作者观察到具有该基因型的拉布拉多寻回犬在限制铜膳食条件下仍出现肝铜蓄积(E.R. den Boer,未发表数据)。然而,不携带 ATP7B 突变的犬如果携带另一种尚未明确的、损害铜代谢的突变,仍可能处于肝铜蓄积的高风险之中。作者建议在停止螯合治疗后的 6 个月或 1 年进行对照活检,具体时机取决于初始肝铜水平、犬的遗传风险和初始肝病的严重程度。如果犬主不愿进行肝活检,可将 ALT 监测作为替代方法,但其与肝铜的量值并不一定相关。螯合治疗结束后,建议饲喂限制铜的膳食,并可考虑补充锌以预防铜的再蓄积。即使采取了管理预防措施,肝铜仍可能再蓄积,因此建议反复测定 ALT,以监测患病动物肝细胞损伤的发生。
铜相关性肝炎高风险犬只与犬种的预防和监测(Prevention and Monitoring of Dogs and Breeds With a High Risk for Copper-Associated Hepatitis)
如前所述,在肝铜蓄积发展的早期进行干预可获得最佳的临床结局,并可能防止永久性肝损伤。亚临床病例的检出具有挑战性,这既由于无创诊断选择有限,也由于个体患病动物的铜蓄积风险未知。当犬在遗传上处于风险之中时,可将预防性监测计划纳入犬的常规兽医诊疗中。
一般而言,临床医师应将来自已知易感犬种的犬,以及暴露于食物和/或饮用水中高铜水平的犬,视为肝铜蓄积风险增加。我们推荐对贝灵顿㹴、拉布拉多寻回犬、杜宾犬和骑士查理王小猎犬进行 DNA 检测。
在群体中预防铜相关性肝炎的另一重要途径是防止高风险的犬只出生。任何犬种中被诊断为(亚临床)铜相关性肝炎的犬都不应用作繁育动物。此外,建议对拉布拉多寻回犬、贝灵顿㹴、杜宾犬和骑士查理王小猎犬进行 DNA 检测,并应利用检测结果避免可能导致 ATP7B:c.4358G>A 突变纯合犬出生(贝灵顿㹴还包括 COMMD1 突变)的配种组合。
总结(SUMMARY)
铜相关性肝炎是犬的一种重要肝脏疾病,可见于多种犬种。犬该病的病因是遗传易感性与环境因素(包括膳食铜摄入)共同作用的结果。致病遗传突变在不同犬种间可能不同,相关突变已在 COMMD1、ATP7A 和 ATP7B 基因中被描述。已知的易感犬种包括贝灵顿㹴、杜宾犬、拉布拉多寻回犬、骑士查理王小猎犬、WHWT 和大麦町犬,尽管任何犬种都可能患病。铜在肝酶升高或临床症状出现之前即已在肝细胞中蓄积。诊断依靠组织病理学评估和肝铜定量。治疗的主要手段包括减少膳食铜和通过螯合清除肝铜。在疾病早期诊断犬只最有价值,可防止晚期疾病发展为肝硬化。为预防疾病发生,可在拉布拉多寻回犬、杜宾犬和贝灵顿㹴中进行基因检测。因携带 ATP7B:c.4358G>A 突变等位基因杂合或纯合而处于遗传风险的犬,可通过 ALT 水平进行监测,并饲喂限制铜的膳食。COMMD1 突变纯合的贝灵顿㹴应接受终身螯合治疗并密切监测。建议采用选择性繁育以降低易感犬种中铜相关性肝炎的发生率。
临床诊疗要点(CLINICS CARE POINTS)
• 铜是一种参与多种机体功能的必需微量元素,但其未结合形式具有毒性,因此铜的摄取、储存、分布和排泄受到严格调控,铜稳态紊乱可导致与铜过载或铜缺乏相关的疾病。
• 犬铜相关性肝炎通常具有遗传与环境混合病因,若干犬种具有易感性,包括贝灵顿㹴、杜宾犬、拉布拉多寻回犬、骑士查理王小猎犬、WHWT 和大麦町犬。然而,病例可发生于多种犬种。
• 在某些犬种中,基因检测有助于识别肝铜蓄积风险增加的犬。
• 犬在肝酶升高或出现临床症状之前,可能存在显著的亚临床铜蓄积。
• 理想情况下,应在肝铜蓄积的较早阶段作出诊断,以降低发生晚期纤维化和肝硬化的可能性。
• 应从肝脏至少 2 个肝叶获取至少 5 份肝活检样本,用于组织病理学检查(包括特殊染色)以及肝铜浓度的定性和定量测定。
• 铜相关性肝炎的主要治疗手段包括限制膳食铜,以及通过螯合治疗清除肝铜。
利益披露(DISCLOSURES)
Kathleen Aicher 是德克萨斯 A&M 大学胃肠道实验室的有偿雇员,该实验室以收费服务的方式提供检测。Hille Fieten 和 Elise R den Boer 是乌得勒支大学兽医遗传学专业知识中心的有偿雇员,该中心同样设有以收费服务方式提供基因检测的实验室。
参考文献(REFERENCES)
- Peña MMO, Lee J, Thiele DJ. A delicate balance: homeostatic control of copper uptake and distribution. American Society for Nutritional Sciences 1999;129(7): 1251–60.
- Halliwell B, Gutteridget JMC. Oxygen toxicity, oxygen radicals, transition metals and disease. J Biochem 1984;219:1–14.
- Linder MC. The relationship of copper to DNA damage and damage prevention in humans. Mutat Res 2012;733(1–2):83–91.
- Linder MC. Copper homeostasis in mammals, with emphasis on secretion and excretion. A review. Int J Mol Sci 2020;21(14):4932.
- van den Berghe PVE, Klomp LWJ. New developments in the regulation of intestinal copper absorption. Nutr Rev 2009;67(11):658–72.
- Lee J, Prohaska JR, Thiele DJ. Essential role for mammalian copper transporter Ctr1 in copper homeostasis and embryonic development. Proc Natl Acad Sci USA 2001;98(12):6842–7.
- Arredondo M, Muñoz P, Mura CV, et al. DMT1, a physiologically relevant apical Cu 1 transporter of intestinal cells. Am J Physiol Cell Physiol 2003;(284):C1525–15330. https://doi.org/10.1152/ajpcell.
- Bertinato J, Swist E, Plouffe LJ, et al. Ctr2 is partially localized to the plasma membrane and stimulates copper uptake in COS-7 cells. Biochem J 2008; 409(3):731–40.
- Van Den Berghe PVE, Folmer DE, Malingré HEM, et al. Human copper transporter 2 is localized in late endosomes and lysosomes and facilitates cellular copper uptake. Biochem J 2007;407(1):49–59.
- Dancis A, Yuan DS, Haile D, et al. Molecular characterization of a copper transport protein in S. cerevisiae: an unexpected role for copper in iron transport. Cell 1994;76:393–402.
- Ohgami RS, Campagna DR, McDonald A, et al. The Steap proteins are metalloreductases. Blood 2006;108(4):1388–94.
- Wyman S, Simpson RJ, McKie AT, et al. Dcytb (Cybrd1) functions as both a ferric and a cupric reductase in vitro. FEBS Lett 2008;582(13):1901–6.
- Yuan DS, Stearman R, Dancis A, et al. The Menkes/Wilson disease gene homologue in yeast provides copper to a ceruloplasmin-like oxidase required for iron uptake. Proc Natl Acad Sci USA 1995;7(92):2632–6.
- Nyasae L, Bustos R, Braiterman L, et al. Dynamics of endogenous ATP7A (Menkes protein) in intestinal epithelial cells: copper-dependent redistribution between two intracellular sites. Am J Physiol Gastrointest Liver Physiol 2007; 292(4). https://doi.org/10.1152/ajpgi.00472.2006.
- Bauerly KA, Kelleher SL, Lönnerdal B. Functional and molecular responses of suckling rat pups and human intestinal Caco-2 cells to copper treatment. JNB (J Nutr Biochem) 2004;15(3):155–62.
- Coyle P, Philcox JC, Carey LC, et al. Metallothionein: the multipurpose protein. Cell Mol Life Sci 2002;59:627–47.
- Freedman JH, Ciriolo MR, Peisach J. The role of glutathione in copper metabolism and toxicity. J Biol Chem 1989;264(10):5598–605.
- Amaravadi R, Glerum DM, Tzagoloff A. Isolation of a cDNA encoding the human homolog of COX17, a yeast gene essential for mitochondrial copper recruitment. Hum Genet 1997;99(3):329–33.
- Culotta VC, Klomp LWJ, Strain J, et al. The copper chaperone for superoxide dismutase. J Biol Chem 1997;272(38):23469–72.
- Hamza I, Schaefer M, Klomp LWJ, et al. Interaction of the copper chaperone HAH1 with the Wilson disease protein is essential for copper homeostasis. Proc Natl Acad Sci USA 1999;96(23):13363–8.
- Klomp LWJ, Lin SJ, Yuan DS, et al. Identification and functional expression of HAH1, a novel human gene involved in copper homeostasis. J Biol Chem 1997;272(14):9221–6.
- Kim BE, Turski ML, Nose Y, et al. Cardiac copper deficiency activates a systemic signaling mechanism that communicates with the copper acquisition and storage organs. Cell Metab 2010;11(5):353–63.
- Larin D, Mekios C, Das K, et al. Characterization of the interaction between the Wilson and Menkes disease proteins and the cytoplasmic copper chaperone, HAH1p. J Biol Chem 1999;274(40):28497–504.
- Van Dongen EMWM, Klomp LWJ, Merkx M. Copper-dependent protein–protein interactions studied by yeast two-hybrid analysis. Biochem Biophys Res Commun 2004;323(3):789–95.
- Yanagimoto C, Harada M, Kumemura H, et al. Copper incorporation into ceruloplasmin is regulated by Niemann-Pick C1 protein. Hepatol Res 2011;41(5): 484–91.
- Campbell CH, Brown R, Linder MC. Circulating ceruloplasmin is an important source of copper for normal and malignant animal cells. Biochim Biophys Acta 1981;678(1):27–38.
- Polishchuk EV, Concilli M, Iacobacci S, et al. Wilson disease protein ATP7B utilizes lysosomal exocytosis to maintain copper homeostasis. Dev Cell 2014;29(6): 686–700.
- Fedoseienko A, Bartuzi P, Van de Sluis B. Functional understanding of the versatile protein copper metabolism MURR1 domain 1 (COMMD1) in copper homeostasis. Ann N Y Acad Sci 2014;1314(1):6–14.
- Miyayama T, Hiraoka D, Kawaji F, et al. Roles of COMM-domain-containing 1 in stability and recruitment of the copper-transporting ATPase in a mouse hepatoma cell line. Biochem J 2010;429(1):53–61.
- Weiss KH, Lozoya JC, Tuma S, et al. Copper-induced translocation of the Wilson disease protein ATP7B independent of Murr1/COMMD1 and Rab7. Am J Pathol 2008;173(6):1783–94.
- Tao TY, Liu F, Klomp L, et al. The copper toxicosis gene product Murr1 directly interacts with the Wilson disease protein. J Biol Chem 2003;278(43):41593–6.
- Mufti AR, Burstein E, Duckett CS. XIAP: cell death regulation meets copper homeostasis. Arch Biochem Biophys 2007;463(2):168–74.
- Hanifeh M, Ataei F. XIAP as a multifaceted molecule in Cellular Signaling. Apoptosis 2022;27(7–8):441–53.
- De Feyter S, Beyens A, Callewaert B. ATP7A-related copper transport disorders: a systematic review and definition of the clinical subtypes. J Inherit Metab Dis 2023;46(2):163–73.
- Wazir SM, Ghobrial I. Copper deficiency, a new triad: anemia, leucopenia, and myeloneuropathy. J Community Hosp Intern Med Perspect 2017;7(4):265–8.
- Teschke R, Eickhoff A. Wilson disease: copper-mediated cuproptosis, ironrelated ferroptosis, and clinical highlights, with comprehensive and critical analysis update. Int J Mol Sci 2024;25(9):4753.
- Ovchinnikova EV, Garbuz MM, Ovchinnikova AA, et al. Epidemiology of Wilson’s disease and pathogenic variants of the ATP7B gene leading to diversified protein disfunctions. Int J Mol Sci 2024;25(4):2402.
- Muller T, Feichtinger H, Berger H, et al. Endemic Tyrolean infantile cirrhosis: an ecogenetic disorder. Lancet 1996;347(9005):877–80.
- Tanner MS. Role of copper in Indian childhood cirrhosis. Am J Clin Nutr 1998; 67(5):1074S–81S.
- Scheinberg IH, Sternlieb I. Wilson disease and idiopathic copper toxicosis. Am J Clin Nutr 1996;63(5):842S–5S.
- Müller T, Müller W, Feichtinger H. Idiopathic copper toxicosis. Am J Clin Nutr 1998;67(5 Suppl):1082S–6S.
- Johnson GF, Sternlieb I, Twedt DC, et al. Inheritance of copper toxicosis in Bedlington terriers. Am J Vet Res 1980;41(11):1865–6.
- Twedt DC, Sternlieb I, Gilbertson SR. Clinical, morphologic, and chemical studies on copper toxicosis of Bedlington terriers. J Am Vet Med Assoc 1979;175(3): 269–75.
- Klomp AEM, van de Sluis B, Klomp LWJ, et al. The ubiquitously expressed MURR1 protein is absent in canine copper toxicosis. J Hepatol 2003;39(5): 703–9.
- Su LC, Owen CA, Zollman PE, et al. A defect of biliary excretion of copper in copper-laden Bedlington terriers. Am J Physiol 1982;243(3):G231–6.
- Van de Sluis B, Rothuizen J, Pearson PL, et al. Identification of a new copper metabolism gene by positional cloning in a purebred dog population. Hum Mol Genet 2002;11(2):165–73.
- Haywood S, Swinburne J, Schofield E, et al. Copper toxicosis in Bedlington terriers is associated with multiple independent genetic variants. Vet Rec 2023; 193(4):e2832. https://doi.org/10.1002/VETR.2832.
- Fieten H, Gill Y, Martin AJ, et al. The Menkes and Wilson disease genes counteract in copper toxicosis in Labrador retrievers: a new canine model for coppermetabolism disorders. Dis Model Mech 2016;9(1):25–38.
- Fieten H, Hooijer-Nouwens BD, Biourge VC, et al. Association of dietary copper and zinc levels with hepatic copper and zinc concentration in Labrador Retrievers. J Vet Intern Med 2012;26(6):1274–80.
- Hoffmann G, Heuven HCM, Leegwater PaJ, et al. Heritabilities of copperaccumulating traits in Labrador retrievers. Anim Genet 2008;39(4):454.
- Hoffmann G, van den Ingh TSGAM, Bode P, et al. Copper-associated chronic hepatitis in labrador retrievers. J Vet Intern Med 2006;20(4):856–61.
- Wu X, Mandigers PJJ, Fieten H, et al. Evaluation of COMMD1 in copper toxicosis in Labrador retrievers and Dobermans. Vet J 2020;265:105561. https:// doi.org/10.1016/J.TVJL.2020.105561.
- Wu X, Mandigers PJJ, Watson AL, et al. Association of the canine ATP7A and ATP7B with hepatic copper accumulation in Dobermann dogs. J Vet Intern Med 2019;33(4):1646–52.
- Mandigers PJJ, van den Ingh TSG a M, Bode P, et al. Association between liver copper concentration and subclinical hepatitis in Doberman Pinschers. J Vet Intern Med 2004;18(5):647–50.
- Speeti M, Eriksson J, Saari S, et al. Lesions of subclinical doberman hepatitis. Vet Pathol 1998;35:361–9.
- Mandigers PJJ, Bode P, van Wees AMTC, et al. Hepatic (64)Cu excretion in Dobermanns with subclinical hepatitis. Res Vet Sci 2007;83(2):204–9.
- Mandigers PJJ, Van den Ingh TSGAM, Bode P, et al. Improvement in Liver Pathology after 4 Months of D-penicillamine in 5 doberman pinschers with subclinical hepatitis. J Intern Med 2005;19:40–3.
- Ullal TV, Lakin S, Gallagher B, et al. Demographic and histopathologic features of dogs with abnormally high concentrations of hepatic copper. J Vet Intern Med 2022;36(6):2016–27.
- Nivy R, Kuzi S, Swinburne J, et al. Copper-associated chronic hepatitis in Cavalier king Charles spaniels. Vet Rec 2024;194(3). e3561–no.
- Thornburg L, Crawford S. Liver disease in West Highland white terriers. Vet Rec 1986;118(4):110.
- Thornburg LP, Rottinghaus G, Dennis G, et al. The relationship between hepatic copper content and morphologic changes in the liver of West Highland white terriers. Vet Pathol 1996;33(6):656–61.
- Thornburg LP, Rottinghaus G, McGowan M, et al. Hepatic copper concentrations in purebred and mixed-breed dogs. Vet Pathol 1990;27(2):81–8.
- Thornburg LP, Shaw D, Dolan M, et al. Hereditary copper toxicosis in West Highland white terriers. Vet Pathol 1986;23(2):148–54.
- Rutgers C, Haywood S, Christian M. Liver disease in Skye terriers. Vet Rec 1987; 121(24):576.
- Haywood S, Rutgers HC, Christian MK. Hepatitis and copper accumulation in Skye terriers. Vet Pathol 1988;25(6):408–14.
- Hirose N, Uchida K, Kanemoto H, et al. A retrospective histopathological survey on canine and feline liver diseases at the University of Tokyo between 2006 and 2012. J Vet Med Sci 2014;76(7):1015.
- Gupta A, Al-Dissi A. Correlation of hepatic copper levels, rhodanine scores and histological diagnosis in archived canine liver samples. Can J Vet Res 2022; 86(4):300.
- Appleman EH, Cianciolo R, Mosenco AS, et al. Transient acquired fanconi syndrome associated with copper storage hepatopathy in 3 dogs. J Vet Intern Med 2008;22(4):1038–42.
- Cooper VL, Carlson MP, Jacobson J, et al. Hepatitis and increased copper levels in a dalmatian. J Vet Diagn Invest 1997;9(2):201–3.
- Webb CB, Twedt DC, Meyer DJ. Copper-associated liver disease in Dalmatians: a review of 10 dogs (1998-2001). J Vet Intern Med 2002;16(6):665–8.
- Nakaichi M, Iseri T, Horikirizono H, et al. Pedigree study of the heredity of copper-associated hepatitis in Dalmatians in Japan. Can Vet J 2022;63(6):633.
- Nakaichi M, Iseri T, Horikirizono H, et al. Copper-associated hepatitis in a young Dalmatian dog in Japan. J Vet Med Sci 2021;83(6):911–5.
- Haywood S, Boursnell M, Loughran MJ, et al. Copper toxicosis in non-COMMD1 Bedlington terriers is associated with metal transport gene ABCA12. J Trace Elem Med Biol 2016;35:83–9.
- Pindar S, Ramirez C. Predicting copper toxicosis: relationship between the ATP7A and ATP7B gene mutations and hepatic copper quantification in dogs. Hum Genet 2019;138:541–6.
- Langlois DK, Nagler BSM, Smedley RC, et al. ATP7A, ATP7B, and RETN genotypes in Labrador Retrievers with and without copper-associated hepatopathy. J Am Vet Med Assoc 2022;260(14):1–8.
- Smedley R, Mullaney T, Rumbeiha W. Copper-associated hepatitis in labrador retrievers. Vet Pathol 2009;46(3):484–90.
- Wu X, Boer ER den, Vos-Loohuis M, et al. Investigation of genetic modifiers of copper toxicosis in labrador retrievers. Life 2020;10(11):266.
- Dyggve H, Meri S, Spillmann T, et al. Antihistone autoantibodies in Dobermans with hepatitis. J Vet Intern Med 2017;31(6):1717–23.
- Dyggve H, Kennedy LJ, Meri S, et al. Association of Doberman hepatitis to canine major histocompatibility complex II. Tissue Antigens 2011;77(1):30–5.
- Dyggve H, Jarva H, Spillmann T, et al. Identification of glyceraldehyde-3phosphate and alcohol dehydrogenases as autoantigens in doberman hepatitis. Scand J Immunol 2017;86(3):156–64.
- van den Ingh T, Rothuizen J, Cupery R. Chronic active hepatitis with cirrhosis in the Doberman Pinscher. Vet Q 1988;10(2). https://doi.org/10.1080/01652176.19 88.9694154.
- Johnson GF, Zawie DA, Gilbertson SR, et al. Chronic active hepatitis in Doberman pinschers. J Am Vet Med Assoc 1982;180(12):1438–42.
- Crawford MA, Schall WD, Jensen RK, et al. Chronic active hepatitis in 26 Doberman pinschers. J Am Vet Med Assoc 1985;187(12):1343–50.
- Poldervaart JH, Favier RP, Van den Ingh TSGAM, et al. Primary hepatitis in dogs: a retrospective review (2002 –2006). J Vet Intern Med 2009;23:72–80.
- Rodrigues A, Leal RO, Girod M, et al. Canine copper-associated hepatitis: a retrospective study of 17 clinical cases. Open Vet J 2020;10(2):128.
- Mutton J, Yeomans S, White J. Copper hepatopathies in Australian dogs. Aust Vet J 2024;102(8):385–91.
- Andersson M, Sevelius E. Breed, sex and age distribution in dogs with chronic liver disease: a demographic study. J Small Anim Pract 1991;32(1):1–5.
- van den Ingh TS, Rothuizen J. Accumulation of copper and iron in the liver of a boxer: a new disease? Tijdschr Diergeneeskd 1992;117(Suppl):16S.
- Bosje JT, Van den Ingh TSGAM, Fennema A, et al. Copper-induced hepatitis in an Anatolian shepherd dog. Vet Rec 2003;152:84–5.
- Kim C, Loftus JP, Huson HJ. Low alanine aminotransferase activity gene variant in a Siberian Husky with copper-associated hepatopathy. BMC Vet Res 2023; 19(1). https://doi.org/10.1186/s12917-023-03681-6.
- Bexfield NH, Buxton RJ, Vicek TJ, et al. Breed, age and gender distribution of dogs with chronic hepatitis in the United Kingdom. Vet J 2012;193(1):124–8.
- Fuentealba C, Guest S, Haywood S, et al. Chronic hepatitis: a retrospective study in 34 dogs. Can Vet J 1997;38(6):365–73.
- Cedeño Y, López-Alonso M, Miranda M. Hepatic concentrations of copper and other metals in dogs with and without chronic hepatitis. J Small Anim Pract 2016; 57(12):703–9.
- Webster CRL, Center SA, Cullen JM, et al. ACVIM consensus statement on the diagnosis and treatment of chronic hepatitis in dogs. J Vet Intern Med 2019; 33(3):1173.
- Strickland JM, Buchweitz JP, Smedley RC, et al. Hepatic copper concentrations in 546 dogs (1982–2015). J Vet Intern Med 2018;32(6):1943–50.
- Johnston AN, Sean P, Wakshlag JJ, et al. Hepatic copper concentrations in Labrador Retrievers with and without chronic hepatitis : 72 cases ( 1980 – 2010). J Am Vet Med Assoc 2013;242(3):372–80.
- Hoffmann G, Jones PG, Biourge V, et al. Dietary management of hepatic copper accumulation in Labrador Retrievers. J Vet Intern Med 2009;23(5):957–63.
- Hill TL, Breitschwerdt EB, Cecere T, et al. Concurrent hepatic copper toxicosis and Fanconi’s syndrome in a dog. J Vet Intern Med 2008;22(1):219–22.
- Langlois DK, Smedley RC, Schall WD, et al. Acquired proximal renal tubular dysfunction in 9 labrador retrievers with copper-associated hepatitis (2006- 2012). J Vet Intern Med 2013;27(3):491–9.
- Yamkate P, Gold RM, Xenoulis PG, et al. Assessment of copper accumulation in archived liver specimens from cats. J Feline Med Surg 2021;23(6):526–33.
- Whittemore JC, Newkirk KM, Reel DM, et al. Hepatic copper and iron accumulation and histologic findings in 104 feline liver biopsies. J Vet Diagn Invest 2012; 24(4):656–61.
- Hurwitz BM, Center SA, Randolph JF, et al. Presumed primary and secondary hepatic copper accumulation in cats. J Am Vet Med Assoc 2014;244(1):68–77.
- Recchia BK, Stokol T, Goto-Koshino Y, et al. Diagnosis, management and genetic analysis of a cat with primary copper hepatopathy. Journal of Feline Medicine and Surgery Open Reports 2023;9(1). https://doi.org/10.1177/20551169 231177275.
- Asada H, Kojima M, Nagahara T, et al. Hepatic copper accumulation in a young cat with familial variations in the ATP7B gene. J Vet Intern Med 2019;33(2):874–8.
- Asada H, Chambers JK, Kojima M, et al. Variations in ATP7B in cats with primary copper-associated hepatopathy. J Feline Med Surg 2020;22(8):753–9.
- Thornburg LP. Histomorphological and immunohistochemical studies of chronic active hepatitis in Doberman Pinscher. Vet Pathol 1998;35(5):380–5.
- Watson ADJ, Middleton DJ, Ilkiw JE. Copper storage disease with intravascular haemolysis in a Bedlington terrier. Aust Vet J 1983;60(10):305–7.
- Favier RP, Spee B, Schotanus BA, et al. COMMD1-Deficient dogs accumulate copper in hepatocytes and provide a good model for chronic hepatitis and fibrosis. PLoS One 2012;7(8). https://doi.org/10.1371/journal.pone.0042158.
- Dirksen K, Burgener IA, Rothuizen J, et al. Sensitivity and specificity of plasma ALT, ALP, and bile acids for hepatitis in labrador retrievers. J Vet Intern Med 2017;31(4):1017–27.
- Momozawa Y, Merveille AC, Battaille G, et al. Genome wide association study of 40 clinical measurements in eight dog breeds. Sci Rep 2020;10(1):1–11.
- White ME, Hayward JJ, Stokol T, et al. Genetic mapping of novel loci affecting canine blood phenotypes. PLoS One 2015;10(12):e0145199. https://doi.org/ 10.1371/JOURNAL.PONE.0145199.
- Kelley D, Lester C, Shaw S, et al. Thromboelastographic evaluation of dogs with acute liver disease. J Vet Intern Med 2015;29(4):1053–62.
- Fry W, Lester C, Etedali NM, et al. Thromboelastography in dogs with chronic hepatopathies. J Vet Intern Med 2017;31(2):419–26.
- Kemp SD, Panciera DL, Larson MM, et al. A comparison of hepatic sonographic features and histopathologic diagnosis in canine liver disease: 138 cases. J Vet Intern Med 2013;27(4):806–13.
- Warren-Smith CMR, Andrew S, Mantis P, et al. Lack of associations between ultrasonographic appearance of parenchymal lesions of the canine liver and histological diagnosis. British Small Animal Veterinary Association Journal of Small Animal Practice 2012;53:168–73.
- Feeney DA, Anderson KL, Ziegler LE, et al. Statistical relevance of ultrasonographic criteria in the assessment of diffuse liver disease in dogs and cats. Am J Vet Res 2008;69(2):212–21.
- Larson MM. Ultrasound imaging of the hepatobiliary system and pancreas. Vet Clin Small Anim Pract 2016;46(3):453–80.
- Lidbury JA. Getting the most out of liver biopsy. Vet Clin Small Anim Pract 2017; 47(3):569–83.
- Moore AR, Medrano E, Coffey E, et al. Clinicopathological correlation and prevalence of increased copper in canine hepatic cytology. J Am Anim Hosp Assoc 2019;55(1):8–13.
- Moore AR, Coffey E, Hamar D. Diagnostic accuracy of Wright–Giemsa and rhodanine stain protocols for detection and semi-quantitative grading of copper in canine liver aspirates. Vet Clin Pathol 2016;45(4):689–97.
- Teske E, Brinkhuis BG, Bode P, et al. Cytological detection of copper for the diagnosis of inherited copper toxicosis in Bedlington terriers. Vet Rec 1992; 131(2):30–2.
- Roth L. Comparison of liver cytology and biopsy diagnoses in dogs and cats: 56 cases. Vet Clin Pathol 2001;30(1):35–8.
- Wang KY, Panciera DL, Al-Rukibat RK, et al. Accuracy of ultrasound-guided fineneedle aspiration of the liver and cytologic findings in dogs and cats: 97 cases (1990–2000). J Am Vet Med Assoc 2004;224(1). https://doi.org/10.2460/javma. 2004.224.75.
- Liggi M, Mais C, Demurtas M, et al. Uneven distribution of hepatic copper concentration and diagnostic value of double-sample biopsy in Wilson’s disease. Scand J Gastroenterol 2013;48(12):1452–8.
- Johnston AJ, Center SA, McDonough SP, et al. Influence of biopsy specimen size, tissue fixation, and assay variation on copper, iron, and zinc concentrations in canine livers. Am J Vet Res 2009;70(12):1502–11.
- Center SA, Mcdonough SP, Bogdanovic L. Digital image analysis of rhodaninestained liver biopsy specimens for calculation of hepatic copper concentrations in dogs. Am J Vet Res 2013;74(12):1474–80.
- van den Ingh TSGAM, Van Winkle T, Cullen JM, et al. Morphological classification of parenchymal disorders of the canine and feline liver: 2. Hepatocellular death, hepatitis and cirrhosis. In: WSAVA standards for clinical and histological diagnosis of canine and feline liver diseases. Elsevier Ltd; 2006. p. 85–101. https://doi.org/10.1016/B978-0-7020-2791-8.50011-3.
- Hoffmann G. Copper-associated liver diseases. Vet Clin Small Anim Pract 2009; 39(3):489–511.
- Van Den Ingh T, Van Winkle T, Cullen J, Charles J, Desmet V. Morphological classification of parenchymal disorders of the canine and feline liver, 2. hepatocellular death, hepatitis and cirrhosis. In: WSAVA Liver Standardization Group, ed. WSAVA Standards for Clinical and Histopathological Diagnosis For Canine and Liver Diseases. Saunders-Elsevier; 2006:85-102.
- Carthew GW, Dey RL. A rapid tissue extraction method for determining liver copper content by atomic absorption spectroscopy. N Z Vet J 1985;33(10):168–70.
- Bode P. Instrumental neutron activation analysis in a routine way. J Trace Microprobe Tech 1990;8(1–2):139–54.
- Weiskirchen S, Kim P, Weiskirchen R. Determination of copper poisoning in Wilson’s disease using laser ablation inductively coupled plasma mass spectrometry. Ann Transl Med 2019;7(Suppl 2):S72. https://doi.org/10.21037/ATM.2018. 10.67.
- Vincent AM, Sordillo LM, Smedley RC, et al. Peripheral markers of oxidative stress in Labrador retrievers with copper-associated hepatitis. J Small Anim Pract 2021;62(10):866–73.
- Dirksen K, Roelen YS, van Wolferen ME, et al. Erythrocyte copper chaperone for superoxide dismutase and superoxide dismutase as biomarkers for hepatic copper concentrations in Labrador retrievers. Vet J 2016;218:1–6.
- Fieten H, Hugen S, van den Ingh TSGAM, et al. Urinary excretion of copper, zinc and iron with and without D-penicillamine administration in relation to hepatic copper concentration in dogs. Vet J 2013;197(2):468–73.
- Roelen YS, Spee B, van Wolferen ME, et al. Serum miR-30b is increased in Labrador Retrievers with elevated hepatic copper levels. Vet J 2025;311. https://doi. org/10.1016/j.tvjl.2025.106335.
- Fieten H, Biourge VC, Watson AL, et al. Nutritional management of inherited copper-associated hepatitis in the Labrador retriever. Vet J 2014;199(3):429–33.
- Fieten H, Biourge VC, Watson AL, et al. Dietary management of labrador retrievers with subclinical hepatic copper accumulation. J Vet Intern Med 2015; 29(3):822–7.
- Bergstrom RF, Kay DR, Wagner JG. The pharmacokinetics of penicillamine in a female mongrel dog. J Pharmacokinet Biopharm 1981;9(5):603–21.
- Fieten H, Dirksen K, van den Ingh TSGaM, et al. d-penicillamine treatment of copper-associated hepatitis in Labrador retrievers. Vet J 2013;196(3):522–7.
- McArdle HJ, Kyriakou P, Grimes A, et al. The effect of d-penicillamine on metallothionein mRNA levels and copper distribution in mouse hepatocytes. Chem Biol Interact 1990;75(3):315–24.
- Xu H, Nakagawa A, Aoyama Y. Suppressive effects of dietary D-penicillamine on the gene expression of hepatic metallothionein-1 and protein level of hepatic metallothionein in Long-Evans Cinnamon rats. Nutr Res 2004;24(11):935–44.
- Chandhok G, Schmitt N, Sauer V, et al. The effect of zinc and D-penicillamine in a stable human hepatoma ATP7B knockout cell line. PLoS One 2014;9(6). https://doi.org/10.1371/journal.pone.0098809.
- Kazemi K, Geramizadeh B, Nikeghbalian S, et al. Effect of D-penicillamine on liver fibrosis and inflammation in Wilson disease. Experimental and Clinical Transplantation 2007;6(4):261–3.
- Langlois DK, Lehner AF, Buchweitz JP, et al. Pharmacokinetics and relative bioavailability of d-penicillamine in fasted and nonfasted dogs. J Vet Intern Med 2013;27(5):1071–6.
- Langlois DK, Querubin JR, Schall WD, et al. Ammonium tetrathiomolybdate treatment of copper-associated hepatopathy in dogs. J Vet Intern Med 2019;33(3): 1336–43.
- Dirksen K, Fieten H. Canine copper-associated hepatitis. Vet Clin North Am Small Anim Pract 2017;47(3):631–44.
- Brewer GJ, Dick RD, Schall W, et al. Use of zinc acetate to treat copper toxicosis in dogs. J Am Vet Med Assoc 1992;201(4):564–8.