伴侣动物实践中用于传染病诊断和正常微生物组表征的二代测序

伴侣动物实践中用于传染病诊断和正常微生物组表征的二代测序

Nora Jean Nealon, DVM, PhD
关键词
- 微生物组
- 16S rRNA
- 全基因组测序
- 宏基因组测序
- 定量PCR (qPCR)
要点
- 二代测序诊断以其高通量能力和快速处理时间而值得关注。
- 二代测序在兽医医学中的用途包括传染病监测和微生物组谱分析诊断。
- 部分由于医学研究和消费者对微生物组兴趣的激增,人们对伴侣动物微生物组谱分析诊断的兴趣日益增加。
- 相对成本、解释的难易程度和周转时间是选择理想二代测序检测时需要考虑的重要因素。
- 临床医生在推荐二代测序检测作为诊断工具和解释结果时,需要考虑每种二代测序方法的局限性。
引言
小动物实践正变得越来越专业化,包括临床医生进行和解释诊断所需的技术和专业知识[1]。在过去十年中,兽医检测和诊断微生物及传染病的技术取得了快速进步,这些方法被称为二代测序(NGS),可快速分析大量DNA和RNA序列[2]。与此同时,NGS驱动的微生物组研究——生活在犬猫患者体内或体表的微生物集合——阐明了微生物组在健康和疾病中的关键作用[3]。
临床医生有必要对NGS方法建立基本理解,尤其是随着这些工具越来越多地被整合到患者评估中。为满足这一需求,本综述将对小动物医学中最常见的NGS方法进行比较概述,讨论每种方法的识别对象和工作原理,重点关注细菌性疾病的检测和评估——这是这些方法应用最广泛、最成熟的领域。为将这些信息置于临床背景下,本综述还将讨论每种方法与兽医实践相关的优势和局限性。总的来说,这些考虑将有助于指导临床医生选择NGS检测和解释结果。
什么是二代测序?
诊断开发一直受到临床对快速、灵敏、特异和具有成本效益检测需求的引导。同时,消费者、临床医生和科学兴趣推动了微生物组诊断在兽医领域的整合[4]。满足这些需求的一个不断增长的研究领域使用NGS方法。NGS包括允许对原核和/或真核核苷酸进行测序的方法。基因测序是指确定DNA和RNA中核苷酸顺序的方法。这些测序方法包括Sanger测序和Maxam-Gilbert测序(第一代)、Roche-454测序、Illumina测序和solid测序(第二代),以及长读长测序(第三代)。第一代测序每次实验运行处理单个核苷酸片段,而第二代和第三代测序同时处理数百万个核苷酸片段[2,5]。由于这种高通量、高输出能力,这些较新的第二代和第三代测序方法统称为NGS。
二代测序的类型及其在小动物实践中的应用
表1. 二代测序技术对比
| 技术 | 描述 | 当前和未来在小动物实践中的应用示例 | 优势 | 局限性 | 参考文献 |
|---|---|---|---|---|---|
| 全基因组测序 | 分析微生物的整个基因组和/或质粒 | • 传染病暴发调查,包括疾病代表高发病率、死亡率和/或人畜共患公共卫生风险时 • 医院病原体监测计划(例如,筛查环境中携带临床重要抗菌药物耐药基因的病原体) |
• 将微生物鉴定到物种或菌株水平 • 识别临床重要基因的存在与否(例如,那些赋予抗菌药物耐药性或致病性的基因) |
• 中等成本 • 不能直接推断微生物功能(例如,致病性) • 时间和资源密集(更长的周转时间,需要超级计算资源) |
13,16,19,21,23,29,30,54 |
| 扩增子(16S rRNA)测序 | 分析微生物组中16S rRNA基因的一个或多个区域 | • 商业化犬猫胃肠道和口腔健康检测试剂盒(例如,AnimalBiome、BasePaws(硕腾旗下)、Purina Petivity) • 评估粪便微生物群移植植入 • 建立微生物组组成与健康与疾病之间的联系,以开发新的诊断和治疗方法 |
• 识别样本中微生物的类型及其相对丰度 • 连续监测患者对治疗的反应或疾病进展 • 相对便宜 |
• 不提供微生物的绝对数量或浓度 • 不能直接推断微生物功能(例如,致病性) • 属和种水平分类学鉴定的分辨率有限 • 样本处理和分析方法的显著变异性可能影响数据解释和临床转化 |
4,9,46-48,50-52 |
| 鸟枪法宏基因组测序 | 分析微生物组中的整个基因组 | • 扩展扩增子测序数据集的解释,包括那些用于解释患者临床健康的数据集,如肠道微生物群检测试剂盒 • 传染病暴发调查的辅助筛查检测,特别是在可能由多微生物、非典型和/或未知病原体驱动暴发的情况下 |
• 识别样本中的微生物类型及其相对丰度以及它们携带的基因 • 推动基因与疾病关联的机制研究,特别是对于与菌群失调相关的健康状况 |
• 昂贵 • 时间和资源密集(更长的周转时间,需要超级计算资源) • 不能直接推断微生物功能(例如,致病性) |
36,53,55,56,63 |
| 转录组和宏转录组测序 | 分析单个微生物在转录过程中产生的RNA序列(转录组学)或微生物组产生的RNA序列(宏转录组学) | • 进一步评估病原体和机会性病原体(检查样本中毒力因子和/或抗菌药物耐药基因的表达) • 识别抗菌药物治疗的新靶点(例如,抑制关键病原体基因的表达) |
• 识别微生物正在表达的基因及其相对表达水平 • 识别样本中的微生物类型、其丰度和它们表达的基因,以及基因表达的相对水平(宏转录组学) • 提供基因表达信息 |
• 可能需要专门的样本采集方法以防止RNA降解 • 昂贵 • 时间和资源密集(更长的周转时间) |
58-62 |
自创建以来,NGS越来越多地应用于临床病例。在兽医医学中,NGS协助传染病诊断,识别新出现的病原体,并帮助监测治疗反应,特别是那些调节肠道微生物组的治疗[6-9]。兽医领域正在出现越来越多的NGS方法,允许临床医生和宠主分析宠物的粪便微生物组[3,4]。为建立这些终点,小动物兽医学中使用的常见和新兴NGS方法包括全基因组测序、16S核糖体RNA(rRNA)测序、鸟枪法宏基因组测序和转录组测序[3,6,7,9]。每种方法将在下面讨论。此外,图1提供了每种NGS技术的图形概述,图2重点介绍了NGS技术在小动物医学中的临床应用。表1总结了临床护理要点,包括每种方法的概述、临床应用、优势和局限性。
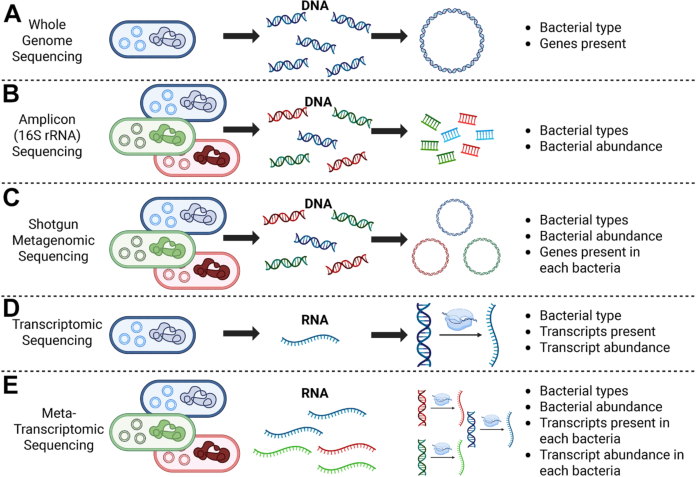
图1. 小动物医学中使用的常规和新兴细菌二代测序方法学概述。(A) 全基因组测序评估单个细菌物种或菌株中的所有DNA。该方法提供关于细菌分类学身份及其携带基因的信息。(B) 扩增子(16S rRNA)测序比较样本中所有细菌DNA的16S rRNA基因。该方法提供关于分类学和丰度的信息。(C) 鸟枪法宏基因组学比较样本中所有细菌的所有DNA。该方法提供分类学、每个分类单元的丰度以及每个细菌携带的基因。(D) 转录组学测量单个细菌物种或菌株中的RNA。该方法提供关于基因表达的信息。(E) 宏转录组学比较样本中所有细菌的所有RNA。该方法提供每个分类单元的分类学和丰度,并指示每个分类单元正在表达的基因。(BioRender制作。Nealon NJ. (2026) https://BioRender.com/dghl4k0.)
全基因组测序
全基因组测序表征单个生物中的整个DNA。在小动物患者中,这通常包括从尿液样本、粪便样本或皮肤拭子中分离的细菌[10-12]。提取后,DNA准备好进行基因组测序。为将DNA片段转化为组装的基因组,计算和统计算法应用于测序文件,通常使用旨在快速处理大文件大小的超级计算资源[13]。虽然一些工作流程基于已知物种序列组装序列,但从头方法使用数学建模,不依赖参考序列[14]。细菌基因组通常包含称为质粒的染色体外DNA,这在细菌间抗菌药物耐药基因的传播中具有临床意义[15]。因此,NGS工作流程开发了允许组装和鉴定细菌可能携带的质粒的工具[16]。
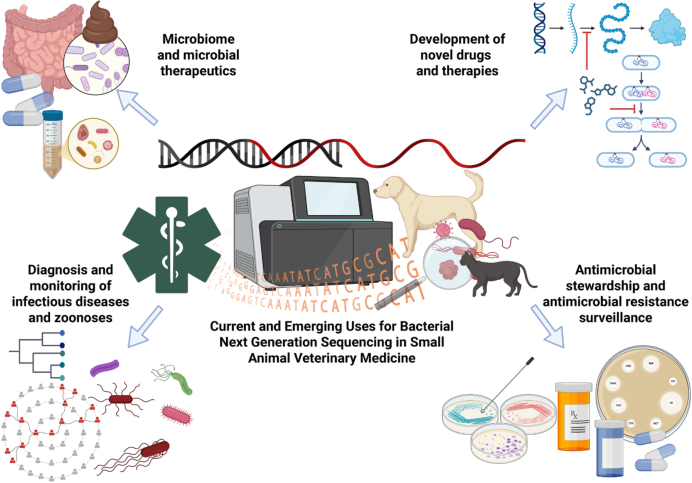
图2. 细菌NGS方法在小动物兽医医学中的现有和新兴用途。细菌NGS方法在小动物医学中有多种现有和新兴用途。在临床上,这些方法有助于开发和解释用于患者疾病管理和/或健康监测的微生物组诊断,包括消费者微生物组检测试剂盒。在疾病暴发期间,NGS可以为接触者追踪提供信息并识别病原体,包括多微生物或非典型细菌性疾病。NGS常规用于医院疾病监测和抗菌药物管理计划,以改善抗菌药物使用和患者安全。正在进行的研究还纳入NGS方法,以识别和测试用于微生物组操纵和/或细菌性疾病治疗的新型疗法。(BioRender制作。Nealon NJ. (2026) https://BioRender.com/obst3f7.)
全基因组测序数据的两个重要且常见的临床问题包括识别存在什么生物和/或它携带什么基因。为解决这些问题,可以将组装的基因组与参考基因组和基因序列库进行比较。将样本中的DNA序列与参考库中的序列比对的过程称为基本局部比对搜索工具(BLAST)[17]。这种方法常用于暴发调查,特别是那些可能感染动物和人的暴发[18-20]。在这些场景中,全基因组指导的分类学鉴定通常足够灵敏,以确定物种、菌株和跨病例的菌株差异,让临床医生实施适当的预防和治疗措施[21-23]。在兽医医学中,全基因组测序样本的BLAST搜索已用于监测抗菌药物耐药病原体的医院监测项目[24-26]。在环境采样、细菌培养和基因组测序之后,与高优先级抗菌药物耐药相关的基因(例如,碳青霉烯耐药)在临床关注分离株的基因组中进行BLAST搜索[24]。这些基因的存在随后为全院消毒和患者管理方案提供信息[24,27,28]。
与其他方法相比,全基因组测序相对便宜,平均样本成本约200美元[29]。然而,临床医生应考虑这种方法的局限性。重要的是,全基因组测序可以识别细菌基因,但它不指示基因表达[30]。例如,全基因组测序可能在医院监测项目中识别的大肠杆菌分离株中检测到碳青霉烯类抗菌药物耐药基因。然而,需要进一步测试以确定这是否转化为对碳青霉烯类的功能性耐药,从而使该药物作为治疗选择无效。考虑到这些局限性,建议临床医生将全基因组测序数据与推断表型的诊断一起解释。在临床实践中,这可以包括抗菌药物药敏谱,其检查细菌在不同抗菌药物存在下如何生长[31];在这里,全基因组测序数据可以提供关于哪些基因赋予这种耐药表型的信息。
表1 小动物实践中微生物二代测序技术的优势和局限性
宏基因组测序:扩增子(16S核糖体RNA)测序
宏基因组测序是指对整个DNA生态系统进行同时测序。在细菌中,宏基因组测序通常用于表征微生物组,即栖息在生态位中的微生物和基因集合,包括粪便微生物组、口腔微生物组和皮肤微生物组[9,32,33]。在小动物医学中应用的常见宏基因组NGS方法包括16S rRNA(扩增子)测序和鸟枪法宏基因组测序。
扩增子测序涉及对样本中所有生物的单个基因区域进行扩增和测序。DNA提取后,通过聚合酶链反应进行基因扩增,该测定产生高浓度的特定DNA区域或基因[6,7]。使用扩增子测序时,被扩增的基因必须在细菌之间有足够的变异,以便分析可以区分分类单元。在细菌中,该基因通常是16S rRNA基因的一个区域,被广泛用于确定不同细菌分类群之间的系统发育关系[34]。在细菌中,16S rRNA基因有9个不同区域用于扩增子测序,提供了多种方法选择[35]。测序后,相似的DNA序列被分组为扩增子共有序列;然后将扩增子与参考扩增子序列匹配以确定分类学[36]。
扩增子测序的日益使用有助于降低其成本,使其作为小动物实践的NGS诊断工具更加普及[37,38]。16S rRNA测序产生的基因序列允许临床医生描述存在哪些分类单元以及每个分类单元的丰度。越来越多的研究表明,在细菌微生物组内,分类单元的存在和丰度随健康和疾病而变化[3,4,9,32,33]。在小动物中,这已在粪便微生物组中得到广泛研究,在肥胖、抗菌药物使用、慢性肠病、寄生虫感染、癫痫、淋巴瘤和化疗以及许多其他病症中观察到扰动[9,39-43]。这种新兴的微生物组研究对抗菌药物管理实践产生了重大影响,支持了益生菌疗法在患者管理中的更多使用,并通过扩展对宿主-微生物相互作用的理解,推进了兽医生理学和病理学的基础知识[4,9,41]。针对宠主的扩增子测序技术在小动物兽医实践中使用越来越多,目的是鼓励人们与兽医一起探索这些结果,以识别其宠物的诊断和/或治疗需求。这包括胃肠道健康检测试剂盒,如AnimalBiome和Nestle Purina PetCare开发的那些[44,45]。这些试剂盒让宠主邮寄粪便样本,并提供微生物组谱分析以及饮食、益生菌和/或粪便微生物群移植产品的产品推荐[4,46-49]。其他基于NGS的微生物组检测试剂盒包括由BasePaws(硕腾公司)和AnimalBiome销售的猫口腔健康检测试剂盒。这些检测将猫口腔微生物组与口腔健康的临床测量(包括口臭和牙齿吸收)相关联,并鼓励宠主使用这些结果寻求兽医的额外口腔健康评估[50,51]。
虽然扩增子 readily用于多种小动物兽医应用,但它有几个局限性。首先,扩增子测序很少具有足够的分辨率来充分鉴定到属以上水平[38]。这种较低的分辨率因此降低了扩增子测序作为确定细菌物种或菌株以进行诊断和疾病暴发管理的工具的有用性。用于处理扩增子测序数据的各种分析策略可能导致用于下游统计比较的DNA序列类型和丰度的巨大差异。换句话说,相同的扩增子测序数据集,当用2种不同方法分析时,可以产生明显不同的结果[38,52]。这使数据解释复杂化并削弱了数据的临床可靠性,特别是如果对一个患者的连续测试使用几种分析策略。
宏基因组测序:鸟枪法宏基因组测序
鸟枪法宏基因组测序是另一种新兴的宏基因组测序类型,正在探索其在小动物兽医医学中的应用。虽然扩增子测序涉及靶向和扩增16S rRNA基因,但鸟枪法宏基因组测序检查样本中所有细菌的整个基因组[6,7]。与全基因组测序和扩增子测序一样,鸟枪法宏基因组学从DNA提取开始。然而,提取后,样本中的所有DNA都被处理,这使鸟枪法宏基因组学与扩增子测序区分开来。测序的基因组使用各种生物信息学工具处理,这些工具过滤掉不需要的序列(例如,当目标是细菌评估时从临床标本中去除宿主DNA),并使用参考基因组库将序列与其分类学身份比对[53]。通过对样本中所有细菌的整个基因组进行测序,鸟枪法宏基因组学提供关于身份、丰度以及每个细菌包含的基因的信息[6,7]。
鸟枪法宏基因组学正在探索其扩展为兽医患者生成的扩增子测序和全基因组测序方法的信息的能力。例如,扩增子测序研究已经建立了小动物粪便微生物组与健康之间的关联[9,45]。为进一步了解微生物组的贡献,鸟枪法宏基因组学可以揭示每种病症背后的微生物基因。反过来,这种方法允许对这些基因和携带它们的微生物物种进行靶向分析。例如,16S研究已经识别了葡萄糖不耐受期间犬粪便微生物组的改变,鸟枪法宏基因组学揭示这与支链氨基酸基因模式的改变相关,支链氨基酸是葡萄糖稳态的重要调节因子[54]。在这一观察之后,这些支链氨基酸基因现在可以作为糖尿病的新型管理策略进行机制探索。在细菌性疾病暴发期间,鸟枪法宏基因组测序可以扩展作为筛查检测的一部分评估的诊断目标,以确定暴发原因,特别是当鉴别诊断指向几种潜在微生物或病原体未知或非典型时[55]。在这种情况下,鸟枪法宏基因组学提供了优于全基因组测序的优势,后者可能无法捕获意外的细菌贡献者或表征多微生物感染。
鸟枪法宏基因组学提供关于兽医患者中包含的细菌的稳健和高分辨率信息。然而,这种方法伴随着处理时间和成本的权衡,在将其用作患者或人群诊断评估的一部分时应考虑这些权衡。与全基因组和扩增子测序相比,鸟枪法宏基因组学通常需要更长的处理时间,并且每个样本的成本显著更高[56]。鉴于传染病管理中干预时间的重要性,这种长处理和分析时间可能限制鸟枪法宏基因组学在小动物实践中的常规使用。随着兽医护理成本的上升[57],小动物临床医生必须考虑这些结果对患者护理决策的整体效用和影响。此外,与扩增子和全基因组测序一样,鸟枪法宏基因组学检查DNA。因此,它不提供关于基因表达的直接信息,这在将基因与健康和疾病表型联系起来时需要考虑。
RNA测序的发展:转录组学和宏转录组学
小动物兽医医学中使用的大多数NGS方法集中于DNA分析。虽然NGS指导的DNA分析提供了关于患者健康的重要临床见解,但它不评估基因表达。为解决这一局限性,新兴的NGS技术正在探索RNA测序。这些RNA测序方法统称为转录组学[58,59]。评估基因表达的常用方法是测量细胞在转录过程中如何产生RNA。转录后,RNA用于产生蛋白质或通过其他机制影响细胞功能。通过提供DNA表达的指示,RNA转录本是预测DNA序列功能的有价值代理,并提供基因型和表型之间的联系[58,59]。
为分离和测序细菌样本中包含的RNA,使用专门试剂制备它们,这些试剂纯化RNA并防止其降解[59]。在许多工作流程中,所得RNA片段在分析之前使用称为逆转录酶的纯化病毒酶转化为其互补DNA链(cDNA)[58]。在较新的工作流程中,RNA可以在不转化为cDNA的情况下进行测序[59]。测序数据与参考基因库比较以确定正在表达哪些基因[59]。与宏基因组学一样,转录组和宏转录组分析提供关于样本中细菌基因表达水平和/或存在与不存在不同实验或临床变量的信息[58,59]。与基于DNA的分析相比,转录组学期间识别的序列匹配代表细胞中正在转化为RNA的遗传物质部分(例如,假定表达的基因)[60]。
与基于DNA的方法一样,转录组学可以在单个细菌物种上进行(转录组学),或者应用于微生物组等群体(宏转录组学)。除了这种差异之外,转录组学和宏转录组学在方法学上是相似的[60]。转录组学和宏转录组学的临床应用正在兽医医学中出现。一个研究领域涉及评估伴侣动物和人之间的人兽共患病传播风险。当检查伴侣动物口腔和直肠拭子的微生物组时,他们意外地识别出推定的共生微生物表达致病性相关基因[61],这一发现基于DNA的NGS方法不会捕获。其他使用犬大肠杆菌的研究正在探索抗菌药物耐药基因表达的机制[62],这可能影响实践中抗菌药物的使用。虽然转录组和宏转录组方法具有推进兽医医学的潜力,但它们仍然昂贵,周转时间长,并且可能需要专门的样本采集技术来限制RNA降解[58,59]。因此,它们在小动物临床实践中的使用仍然有限,在临床医生更容易获得之前需要持续的研究。
总结
NGS方法是小动物医学中新兴的诊断工具,特别是在细菌性疾病管理和微生物组评估中。鉴于消费者对基于NGS的诊断检测试剂盒的日益增长的需求和使用,以及它们在临床研究中的使用增加,预计它们将继续被整合到兽医医疗环境中。虽然全基因组和扩增子测序被更广泛地使用,但鸟枪法宏基因组学和转录组学因其在临床实践中的效用而越来越受到探索。随着小动物医学变得越来越专业化,客户要求为其宠物提供个性化医疗方法,临床医生将NGS方法整合到临床评估中的能力将变得越来越重要。因此,临床医生需要了解每种检测的好处和局限性,并与宠主沟通。最终,反思这些NGS方法背后的方法学将有助于提高兽医为患者提供的护理水平,特别是在管理细菌和微生物组相关疾病时。
临床护理要点
- 相对成本、解释的难易程度和周转时间是选择理想二代测序检测时需要考虑的重要因素。
- 临床医生在推荐二代测序检测作为诊断工具和解释结果时,需要考虑每种二代测序方法的局限性。
致谢
作者感谢他们过去和现在的导师和同事,感谢他们帮助建立二代测序的专业知识并理解其在兽医临床医学中的应用。
披露
作者无任何披露。本文的发表使用了Rowan大学Shreiber兽医学院为N.J. Nealon博士提供的机构启动资金支持。
参考文献
- Drzemalla L, Kleinsorgen C, Tipold A. Clinical training in veterinary medicine: perspectives on quality and the role of specialists. Front Vet Sci 2025;12.
- Eren K, Taktakoglu N, Pirim I. DNA sequencing methods: from past to present. Eurasian J Med 2022;54(Suppl 1):S47–56.
- Shah H, Trivedi M, Gurjar T, et al. Decoding the gut microbiome in companion animals: impacts and innovations. Microorganisms 2024;12(9):1831.
- Smith B. The heroes within: utilizing the gut microbiome, microbiome therapeutics, and fecal microbiota transplant in managing companion animal health and disease. JAVMA 2025;263(2).
- Chaves M, Hashish A, Goraichuk IV, et al. Nanopore sequencing in veterinary medicine: from concepts to clinical applications. Front Cell Infect Microbiol 2025;15:1701570.
- Domrazek K, Jurka P. Application of next-generation sequencing (NGS) techniques for selected companion animals. Animals (Basel) 2024;14(11):1578.
- Van Borm S, Belak S, Freimanis G, et al. Next-generation sequencing in veterinary medicine: how can the massive amount of information arising from high-throughput technologies improve diagnosis, control, and management of infectious diseases? Methods Mol Biol 2015;1247:415–36.
- Luo J, Lu W, Liu R, et al. From panels to pathogen networks: the expanding role of targeted sequencing in veterinary medicine. Biology 2025;14(8):1075.
- Suchodolski JS. Analysis of the gut microbiome in dogs and cats. Vet Clin Pathol 2022;50(Suppl 1):6–17.
- Saengsawang P, Tanonkaew R, Kimseng R, et al. Whole genome sequence analysis of multidrug-resistant Staphylococcus aureus and Staphylococcus pseudintermedius isolated from superficial pyoderma in dogs and cats. Antibiotics (Basel) 2025;14(7):643.
- Jousserand N, Auvray F, Chagneau C, et al. Zoonotic potential of uropathogenic Escherichia coli lineages from companion animals. Vet Res 2025;56(1):69.
- Boehmer T, Vogler AJ, Thomas A, et al. Phenotypic characterization and whole genome analysis of extended-spectrum beta-lactamase-producing bacteria isolated from dogs in Germany. PLoS One 2018.
- Bagger FO, Borgwardt L, Jespersen AS, et al. Whole genome sequencing in clinical practice. BMC Med Genomics 2024;17:39.
- Li IC, Yu GY, Huang JF, et al. Comparison of Reference-Based Assembly and De Novo Assembly for Bacterial Plasmid Reconstruction and AMR Gene Localization in Salmonella enterica Serovar Schwarzengrund Isolates. Microorganisms 2022;10(2):227.
- Hallal Ferreira Raro O, Poirel L, Tocco M, et al. Impact of veterinary antibiotics on plasmid-encoded antibiotic resistance transfer. J Antimicrob Chemother 2023;78(9).
- Orlek A, Stoesser N, Anjum MF, et al. Plasmid classification in an era of whole-genome sequencing: application in studies of antibiotic resistance epidemiology. Front Microbiol 2017;8:182.
- Price TK, Realegeno S, Mirasol R, et al. Validation, implementation, and clinical utility of whole genome sequence-based bacterial identification in the clinical microbiology laboratory. J Mol Diagn 2021;23(11):1468–77.
- Puangseree J, Hein ST, Prathan R, et al. Genomic insights into multidrug-resistant Salmonella enterica isolates from pet dogs and cats. Sci Rep 2025;15(1):22104.
- Gilchrist CA, Turner SD, Riley MF, et al. Whole-genome sequencing in outbreak analysis. Clin Microbiol Rev 2015;28(3):541–63.
- Holmes A, Allison L, Ward M, et al. Utility of whole-genome sequencing of Escherichia coli O157 for outbreak detection and epidemiological surveillance. J Clin Microbiol 2015;53(11):3565–73.
- Jones JL, Wang L, Ceric O, et al. Whole genome sequencing confirms source of pathogens associated with bacterial foodborne illness in pets fed raw pet food. J Vet Diagn Invest 2019;31(2):235–40.
- Jorgensen HJ, Valheim M, Sekse C, et al. An official outbreak investigation of acute haemorrhagic diarrhoea in dogs in Norway points to Providencia alcalifaciens as a likely cause. Animals 2021;11(11):3201.
- Robb AR, Ure R, Chaput DL, et al. Emergence of novel methicillin resistant Staphylococcus pseudintermedius lineages revealed by whole genome sequencing of isolates from companion animals and humans in Scotland. PLoS One 2024;19(7):e0305211.
- King C, Diaz-Campos D, Mollenkopf D, et al. Management of carbapenem-resistant Enterobacterales in a veterinary hospital environment utilizing surveillance with infection control and prevention measures. J Vet Intern Med 2026;40(1):aalaf023.
- Hoet AE, Johnson A, Nava-Hoet RC, et al. Environmental methicillin-resistant Staphylococcus aureus in a veterinary teaching Hospital during a nonoutbreak period. Vector Borne Zoonotic Dis 2011;11(6):609–15.
- Mathys DA, Mollenkopf DF, Van Balen JC, et al. β-Lactam and fluoroquinolone-resistant enterobacteriaceae recovered from the environment of human and veterinary tertiary care hospitals. Vector Borne Zoonotic Dis 2018;18(11):620–3.
- Maddock KJ, Bowden R, Cole SD, et al. Current state and future directions for veterinary antimicrobial resistance research. Am J Vet Res 2024.
- DeStefano I, Fellman CL, Bergeron AC, et al. Effective mitigation of an outbreak of New Delhi metallo-β-lactamase–producing Escherichia coli infections in a small animal veterinary teaching hospital. J Am Vet Med Assoc 2025.
- Price V, Ngwira LG, Lewis JM, et al. A systematic review of economic evaluations of whole-genome sequencing for the surveillance of bacterial pathogens. Microb Genom 2023;9(2):mgen000947.
- Quainoo S, Coolen JPM, van Hijum SAFT, et al. Whole-genome sequencing of bacterial pathogens: the future of nosocomial outbreak analysis. Clin Microbiol Rev 2017;31(1).
- Maddock KJ, Burbick CR, Cole SD, et al. A one health perspective on the use of genotypic methods for antimicrobial resistance prediction. J Am Vet Med Assoc 2024.
- Davis EM, Weese JS. Oral microbiome in dogs and cats: dysbiosis and the utility of antimicrobial therapy in the treatment of periodontal disease. Vet Clin North Am Small Anim Pract 2022;52(1):107–19.
- Weese JS. The canine and feline skin microbiome in health and disease. Vet Dermatol 2013;24(1):137–45.e31.
- Janda JM, Abbott SL. 16S rRNA gene sequencing for bacterial identification in the diagnostic laboratory: pluses, perils, and pitfalls. J Clin Microbiol 2007;45(9):2761–4.
- Weinroth MD, Belk AD, Dean C, et al. Considerations and best practices in animal science 16S ribosomal RNA gene sequencing microbiome studies. J Anim Sci 2022;100(2):skab346.
- Liu YX, Qin Y, Chen T, et al. A practical guide to amplicon and metagenomic analysis of microbiome data. Protein Cell 2021;12(5):315–30.
- Minich JJ, Humphrey G, Benitez RAS, et al. High-throughput miniaturized 16S rRNA amplicon library preparation reduces costs while preserving microbiome integrity. mSystems 2018;3(6).
- Boers SA, Jansen R, Hays JP. Understanding and overcoming the pitfalls and biases of next-generation sequencing (NGS) methods for use in the routine clinical microbiological diagnostic laboratory. Eur J Clin Microbiol Infect Dis 2019;38(6):1059–70.
- Kim H, Seo J, Park T, et al. Obese dogs exhibit different fecal microbiome and specific microbial networks compared with normal weight dogs. Sci Rep 2023;13(1):723.
- Berry ASF, Johnson K, Martins R, et al. Natural infection with giardia is associated with altered community structure of the human and canine gut microbiome. mSphere 2020;5(4).
- Pilla R, Gaschen FP, Barr JW, et al. Effects of metronidazole on the fecal microbiome and metabolome in healthy dogs. J Vet Intern Med 2020;34(5):1853–66.
- Verdoodt F, Hesta M, Goossens E, et al. The fecal metabolome and microbiome are altered in dogs with idiopathic epilepsy compared to healthy dogs. Sci Rep 2025;15(1):27024.
- Aragon J, Weber AM, Tipton M, et al. Impacts of vincristine and prednisolone chemotherapy on the canine gut microbiota in dogs undergoing treatment for lymphoma. Vet Comp Oncol 2025;23(3):388–400.
- Rojas CA, Park B, Scarsella E, et al. Species-level characterization of the core microbiome in healthy dogs using full-length 16S rRNA gene sequencing. Front Vet Sci 2024;11.
- Ganz HH, Jospin G, Rojas CA, et al. The kitty microbiome project: defining the healthy fecal "Core Microbiome" in pet domestic cats. Vet Sci 2022;9(11):635.
- Basic Dog & Cat Microbiome Analysis Kit | Petivity.
- Advanced dog & cat microbiome analysis kit. Petivity.
- Comprehensive dog & cat microbiome analysis kit | Petivity.
- Carapeto S, Cunha E, Serrano I, et al. Effect of the administration of a lyophilised faecal capsules on the intestinal microbiome of dogs: a pilot study. Genes 2023;14(9):1676.
- Kao D, Yang J, Nisperos S, et al. Development of an oral swab based microbiome test for the detection of feline dental disease. bioRxiv 2021.
- Oral microbiome test for cats. AnimalBiome.
- Gloor GB, Macklaim JM, Pawlowsky-Glahn V, et al. Microbiome datasets are compositional: and this is not optional. Front Microbiol 2017;8.
- Setubal JC. Metagenome-assembled genomes: concepts, analogies, and challenges. Biophys Rev 2021;13(6):905–9.
- Lewis S, Nash A, Li Q, et al. Comparison of 16S and whole genome dog microbiomes using machine learning. BioData Min 2021;14:41.
- Chen H, Li J, Yan S, et al. Identification of pathogen(s) in infectious diseases using shotgun metagenomic sequencing and conventional culture: a comparative study. PeerJ 2021;9:e11699.
- Dulanto Chiang A, Dekker JP. From the pipeline to the bedside: advances and challenges in clinical metagenomics. J Infect Dis 2020;221(Suppl 3):S331–40.
- Benson J, Tincher EM. Cost of care, access to care, and payment options in veterinary practice. Vet Clin North Am Small Anim Pract 2024;54(2):235–50.
- Khodadadian A, Darzi S, Haghi-Daredeh S, et al. Genomics and transcriptomics: the powerful technologies in precision medicine. Int J Gen Med 2020;13:627–40.
- Lowe R, Shirley N, Bleackley M, et al. Transcriptomics technologies. PLoS Comput Biol 2017;13(5):e1005457.
- Ojala T, Hakkinen AE, Kankuri E, et al. Current concepts, advances, and challenges in deciphering the human microbiota with metatranscriptomics. Trends Genet 2023;39(9):686–702.
- Wu WC, Pan YF, Zhou WD, et al. Meta-transcriptomic analysis of companion animal infectomes reveals their diversity and potential roles in animal and human disease. mSphere 2024;9(8).
- Ceres K, Zehr JD, Murrell C, et al. Evolutionary genomic analyses of canine E. coli infections identify a relic capsular locus associated with resistance to multiple classes of antimicrobials. Appl Environ Microbiol 2024;90(8).
- Shah N, Tang H, Doak TG, et al. Comparing bacterial communities inferred from 16S rRNA gene sequencing and shotgun metagenomics. Pac Symp Biocomput 2011:165–76.